
Falscher Mehltau ist in der Lage, seinen sexuellen Vermehrungszyklus auf resistenten Rebsorten zu vollziehen Basiert auf dem wissenschaftlichen Artikel “Evidence for sexual reproduction and fertile oospore production by Plasmopara viticola on the leaves of partially resistant grapevine varieties” (ACTA Horticulturae, 2019). Originalsprache des Artikels: Französisch.

Frühere Studien haben gezeigt, dass die durch die asexuelle Vermehrung von Falschem Mehltau verursachten Epidemien durch neue, resistente Rebsorten begrenzt werden können. Bisher mangelte es jedoch an Wissen über die sexuelle Phase des Erregers. Diese Studie zeigte, dass die Resistenz der Rebe wenig Einfluss auf die geschlechtliche Vermehrung von Falschem Mehltau hat. Somit kann der Erreger seinen Lebenszyklus (asexuelle und sexuelle Phase) bei teilweise resistenten Rebsorten abschließen. Der Fortbestand von Krankheitserregern bei nur teilweise resistenten Sorten von einem Jahr zum nächsten, stellt eine große Herausforderung für den Fortbestand der genetischen Resistenz der Rebe dar.
Die verschiedenen Vitis vinifera Sorten sind sehr empfindlich gegenüber dem Falschen Mehltau
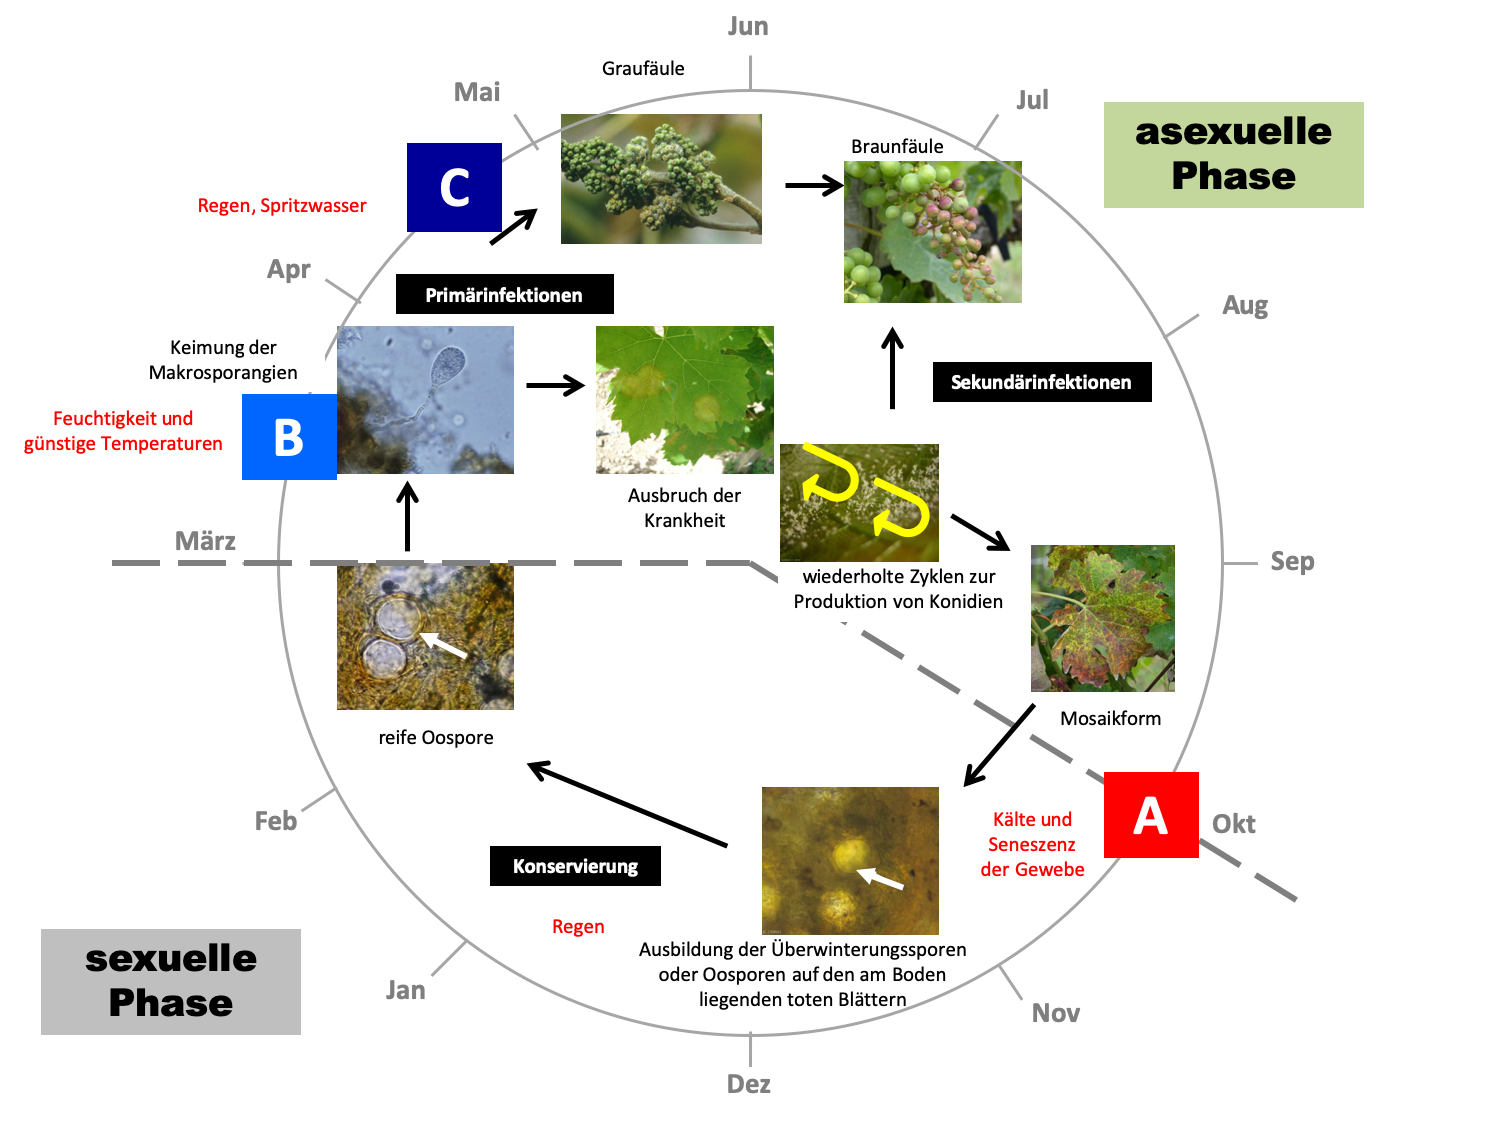
Durch Kreuzungen wurden in den vergangenen Jahren Rebsorten entwickelt, die Resistenzen gegenüber dem Echten und dem Falschen Mehltau aufweisen und die gleichzeitig organoleptische Eigenschaften tragen, die die Herstellung von Qualitätsweinen erlauben. Diese Sorten tragen Resistenzfaktoren, die von wilden Pflanzen der Gattung Vitis stammen, die amerikanischen und asiatischen Ursprungs sind. Die vor Kurzem in Frankreich registrierten Sorten weisen eine teilweise Resistenz gegenüber dem Falschen Mehltau auf. Dadurch wird das Wachstum und die Sporulation des Myzels begrenzt und somit das Auftreten von Epidemien aufgrund des asexuellen Vermehrungszyklus des Erregers während der Saison verringert. Bisher wurde jedoch die Auswirkung der Resistenz der Wirtspflanze auf den sexuellen Vermehrungszyklus des Falschen Mehltaus nicht untersucht (Abb. 1). In der Tat hat Plasmopara viticola ein gemischtes Fortpflanzungssystem, das auf mehreren Zyklen der asexuellen Fortpflanzung basiert, mit einem einzigen sexuellen Zyklus pro Jahr der im Herbst stattfindet (Abb. 2) 
Abbildung 1. Sexuelle Fortpflanzung des Falschen Mehltaus auf Weinblättern: A) Mosaikform, B) Keimung von Makrosporangien im Frühjahr (Fotos: Delbac & Rolle, INRAE).
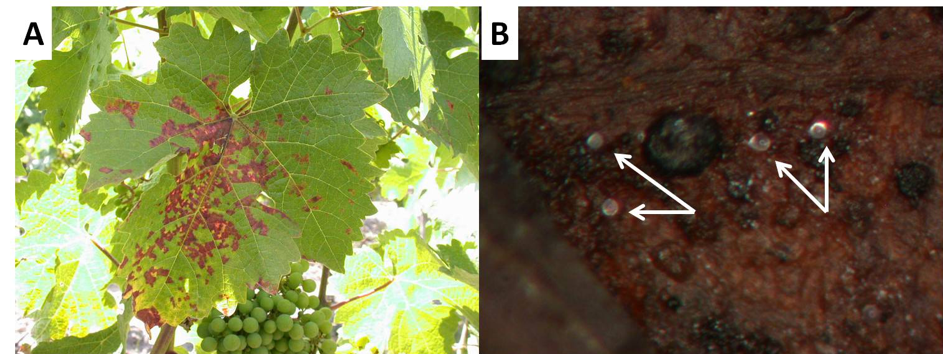
Abbildung 2. Vermehrungszyklen des Falschen Mehltaus und Zeitpunkte, zu denen Untersuchungen durchgeführt wurden (Fotos: Blancard, Bugaret, Delbac & Mazet, INRAE).
Der experimentelle Ansatz
Das untersuchte Pflanzenmaterial stammt von den Nachkommen der Kreuzung von Mtp3082-1-42 und Regent. Merlot, der sensitiv gegenüber dem Falschen Mehltau ist, diente als Kontrolle. Der Resistenzfaktor Rpv1 stammt von dem Elternstamm Mtp3082-1-42 und Rpv3 wurde von Regent vererbt. Rpv1 und Rpv3 führen zu einer teilweisen bis erhöhten Resistenz
Das Vorhandensein von Oosporen und deren Keimfähigkeit wurde mit Hilfe von Methoden ermittelt und analysiert, die sich an von INRAE veröffentlichte Protokolle anlehnten
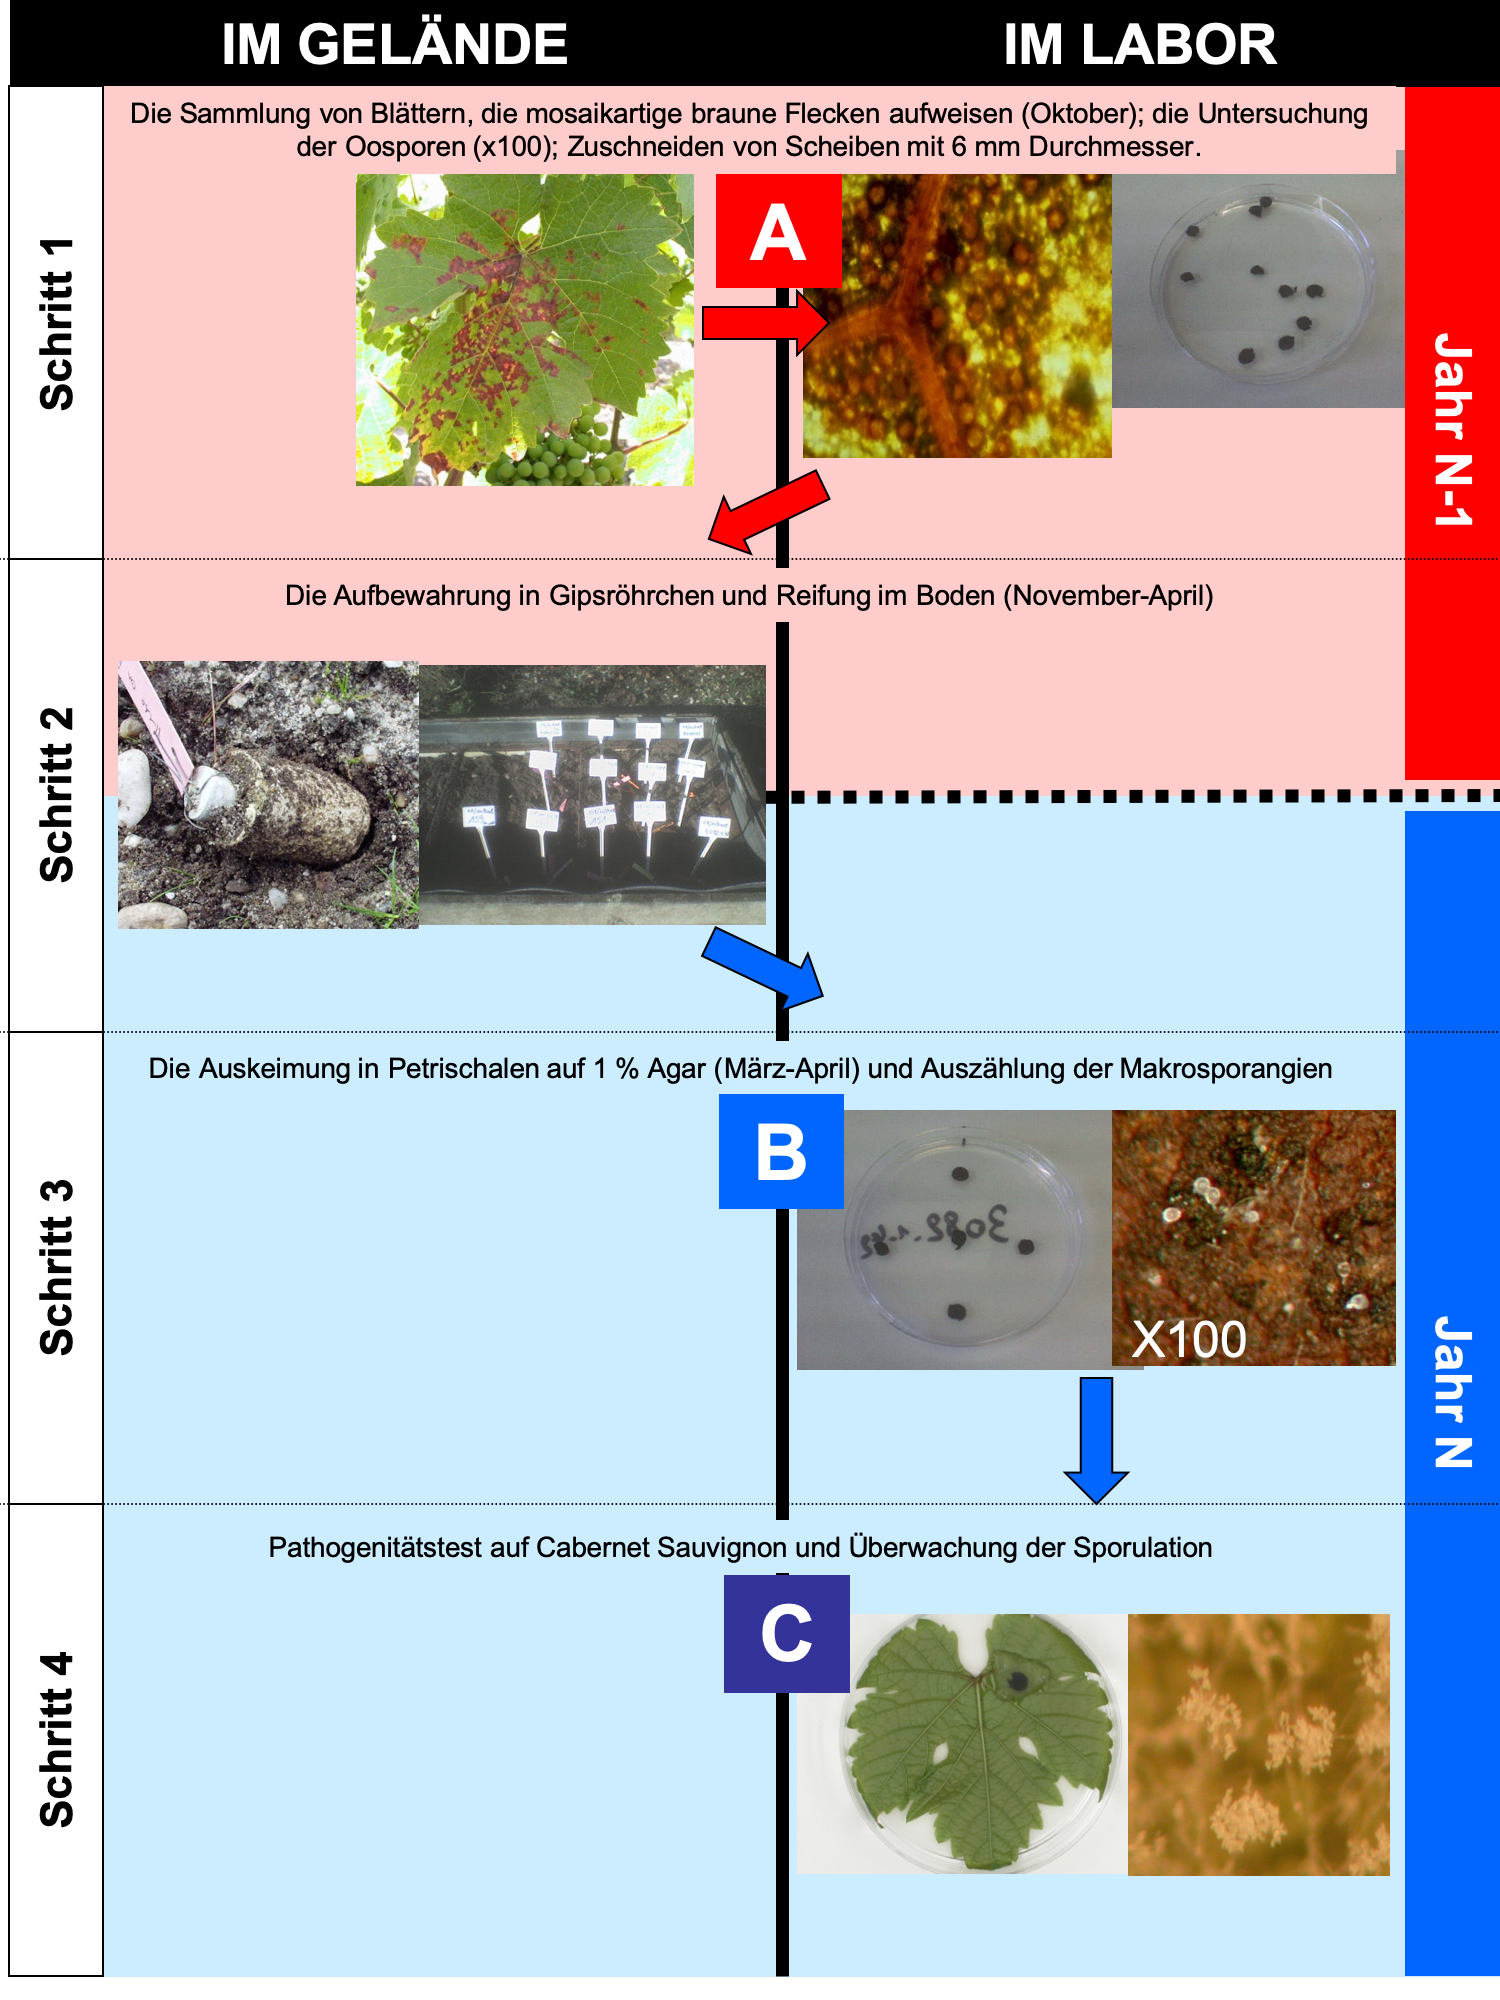
(A) Die Sammlung von Blättern, die typische mosaikartige braune Flecken im Herbst zeigten (Abb. 1A). Dazu wurde der nekrotische Teil der Blattspreiten auf das Vorhandensein von Oosporen untersucht. Danach wurden Proben in Form von runden Blattschnitten genommen, die in Gipsröhrchen zwischen Oktober (Jahr n-1) und April (Jahr n) im Boden vergraben wurden, um natürliche klimatische Bedingungen zu gewährleisten.
(B) Die Bestimmung der Anzahl der im Frühjahr (April Jahr n) gebildeten Makrosporangien (Abb. 1B).
(C) Die Inokulation einer nicht resistenten Sorte (Cabernet Sauvignon-Blättern) mit den gebildeten Makrosporangien, um Primärinfektionen des Krankheitserregers auszulösen. Die Methoden dafür sind in den Abbildungen 2 und 3 detailliert beschrieben.
Abbildung 3. Experimentelle Schritte zur Untersuchung der sexuellen Phase des Falschen Rebenmehltaus (Fotos: Delbac, Rolle & Tran Mahn Sung, INRAE).
Die Oosporen des sexuellen Vermehrungszyklus bei resistenten Rebsorten
Im Herbst produziert der Falsche Mehltau Überwinterungsporen auch auf den resistenten Rebsorten. Die Oosporenproduktion ist jedoch bei empfindlichen Pflanzen höher als bei resistenten. Das heißt, dass Rpv1 und Rpv3 die Produktion der Oosporen des Erregers reduziert, aber nicht verhindert.
Die Oosporen keimen dann im folgenden Frühjahr aus. Sorten, die den Faktor Rpv1 tragen, haben eine hohe Produktionsrate von Makrosporangien gezeigt. Für alle Genotypen fanden wir eine große Variabilität in der Produktion von Makrosporangien in Abhängigkeit vom Datum der Analyse.
Die von Makrosporangien verursachten Primärinfektionen treten bei allen Kombinationen von Resistenzfaktoren auf. Es wurden jedoch signifikante Unterschiede zwischen den einzelnen Rebsorten gefunden. Zum Beispiel wies eine der Pflanzen mit dem Genotyp Rpv1/ Rpv3 im Gegensatz zu einer anderen mit den Genotyp Rpv3 eine höhere Rate von Primärinfektionen auf.
Was lernen wir daraus?
Resistente Sorten bieten die Möglichkeit die asexuelle Vermehrung des Falschen Mehltaus während der Wachstumsperiode zu begrenzen, was eine teilweise Kontrolle der Krankheit erlaubt. Daten des nationalen OSCAR-Observatoriums zeigen, dass der Anbau resistenter Sorten den Einsatz von Fungiziden in Parzellen um mehr als 80 % reduzieren kann
Es besteht natürlich die Gefahr, dass sich in Zukunft Stämme des Falschen Mehltaus herausbilden, die die Resistenzen der Reben umgehen können. Dieses klassische Phänomen tritt auf, wenn Resistenzgene in großem Maßstab eingesetzt werden. Obwohl die Anzahl der Pilzsporen pro Rebe ein wichtiger Faktor ist, wurde anfänglich davon ausgegangen, dass die Verwendung dieser resistenten Rebsorten im Weinberg die Wahrscheinlichkeit verringert, dass sich eine vorteilhafte Mutation des Krankheitserregers während der asexuellen Vermehrungszyklen herausbildet. Die Ergebnisse dieser Studie zeigen jedoch, dass die Resistenz der Rebe die sexuelle Fortpflanzungsphase des Erregers nicht blockiert. Die Vollendung des Fortpflanzungszyklus bietet dem Erreger daher die Möglichkeit, vorteilhafte Mutationen durch Rekombination zu erzeugen und somit die Resistenzen der Pflanzen schneller zu umgehen.
Zusätzliche Strategien zur Bekämpfung von Epidemien können implementiert werden, um das Auftreten virulenter Stämme von Falschem Rebenmehltau zu begrenzen. Diese Strategien können z. B. die Langzeitüberwachung der Erregervirulenz (z. B. durch das nationale OSCAR-Observatorium
NOTES
- Yin, L. et al. Genome sequence of Plasmopara viticola and insight into the pathogenic mechanism. Sci. Rep. 7, (2017).
- Gessler, C., Pertot, I. & Perazzolli, M. Plasmopara viticola: a review of knowledge on downy mildew of grapevine and effective disease management. Phytopathol. Mediterr. 50, 3–44 (2011).
- Delmas, C. E., Dussert, Y., Delière, L., Couture, C., Mazet, I. D., Richart Cervera, S., & Delmotte, F. (2017). Soft selective sweeps in fungicide resistance evolution: recurrent mutations without fitness costs in grapevine downy mildew. Molecular ecology, 26(7), 1936–1951. https://doi.org/10.1111/mec.14006
- Gessler, C., Pertot, I. & Perazzolli, M. Plasmopara viticola: a review of knowledge on downy mildew of grapevine and effective disease management. Phytopathol. Mediterr. 50, 3–44 (2011).
- Dubos, B. Maladies cryptogamiques de la vigne. Champignons parasites des organes herbacés et du bois de la vigne. Edts Féret (1999).
- Merdinoglu, D., Schneider, C., Prado, E., Wiedemann-Merdinoglu, S., & Mestre, P. (2018). Breeding for durable resistance to downy and powdery mildew in grapevine. OENO One, 52(3), 203-209. https://doi.org/10.20870/oeno-one.2018.52.3.2116
- Ronzon-Tran Manh Sung, C. & Clerjeau, M. Techniques for formation, maturation and germination of Plasmopara viticola oospores under control conditions. Plant Dis. 72, 938–941 (1988).
- Guimier, S. et al. OSCAR, a national observatory to support the durable deployment of disease-resistant grapevine varieties. Acta Hortic. 1248, (21-33), (2019).
- Guimier, S. et al. OSCAR, a national observatory to support the durable deployment of disease-resistant grapevine varieties. Acta Hortic. 1248, (21-33), (2019).
- Guimier, S. et al. OSCAR, a national observatory to support the durable deployment of disease-resistant grapevine varieties. Acta Hortic. 1248, (21-33), (2019).
- Delbac, L., Delière, L., Schneider, C. & Delmotte, F. Evidence for sexual reproduction and fertile oospore production by Plasmopara viticola on the leaves of partially resistant grapevine varieties. Acta Hortic. 1248, 607–619 (2019).
Literaturhinweise
- Delbac, L., Delière, L., Schneider, C. & Delmotte, F. Evidence for sexual reproduction and fertile oospore production by Plasmopara viticola on the leaves of partially resistant grapevine varieties. Acta Hortic. 1248, 607–619 (2019).
- Yin, L. et al. Genome sequence of Plasmopara viticola and insight into the pathogenic mechanism. Sci. Rep. 7, (2017).
- Gessler, C., Pertot, I. & Perazzolli, M. Plasmopara viticola: a review of knowledge on downy mildew of grapevine and effective disease management. Phytopathol. Mediterr. 50, 3–44 (2011).
- Delmas, C. E., Dussert, Y., Delière, L., Couture, C., Mazet, I. D., Richart Cervera, S., & Delmotte, F. (2017). Soft selective sweeps in fungicide resistance evolution: recurrent mutations without fitness costs in grapevine downy mildew. Molecular ecology, 26(7), 1936–1951. https://doi.org/10.1111/mec.14006
- Dubos, B. Maladies cryptogamiques de la vigne. Champignons parasites des organes herbacés et du bois de la vigne. Edts Féret (1999).
- Merdinoglu, D., Schneider, C., Prado, E., Wiedemann-Merdinoglu, S., & Mestre, P. (2018). Breeding for durable resistance to downy and powdery mildew in grapevine. OENO One, 52(3), 203-209. https://doi.org/10.20870/oeno-one.2018.52.3.2116
- Ronzon-Tran Manh Sung, C. & Clerjeau, M. Techniques for formation, maturation and germination of Plasmopara viticola oospores under control conditions. Plant Dis. 72, 938–941 (1988).
- Guimier, S. et al. OSCAR, a national observatory to support the durable deployment of disease-resistant grapevine varieties. Acta Hortic. 1248, (21-33), (2019).
Artikelstatistik
 Ansichten: 4075
Downloads
 PDF: 204