
¿Qué tipo de sanitización debiese aplicarse para remover los biofilms de Brettanomyces bruxellensis? Idioma original del artículo: inglés.

Se confirmó la capacidad de cinco cepas de Brettanomyces bruxellensis para formar biofilms en acero inoxidable, y la sanitización de estos biofilms fue testeada usando una solución de ácido láctico y un método de referencia (una solución de soda cáustica espumosa y peróxido al 5 %). Se observaron diferentes respuestas dependiendo de la cepa: la solución de ácido láctico indujo una ligera reducción en la población celular, mientras que el método de referencia resultó en la eliminación de las células adheridas para tres cepas, pero generó estados VPNC para otras dos. Los efectos de la sanitización en el biofilm formado es dependiente de la cepa.
Introducción
La sanitización de la bodega representa la base de las pautas para controlar las contaminaciones microbianas y, en particular, la contaminación por Brettanomyces bruxellensis. En efecto, esta levadura contaminante es capaz de sobrevivir bajo condiciones de estrés; por ejemplo, en presencia de sulfitos
En la actualidad, el proceso más comúnmente utilizado para limpiar tanques es la aplicación una mezcla de soluciones químicas diluidas que contienen detergentes alcalinos y soluciones ácidas
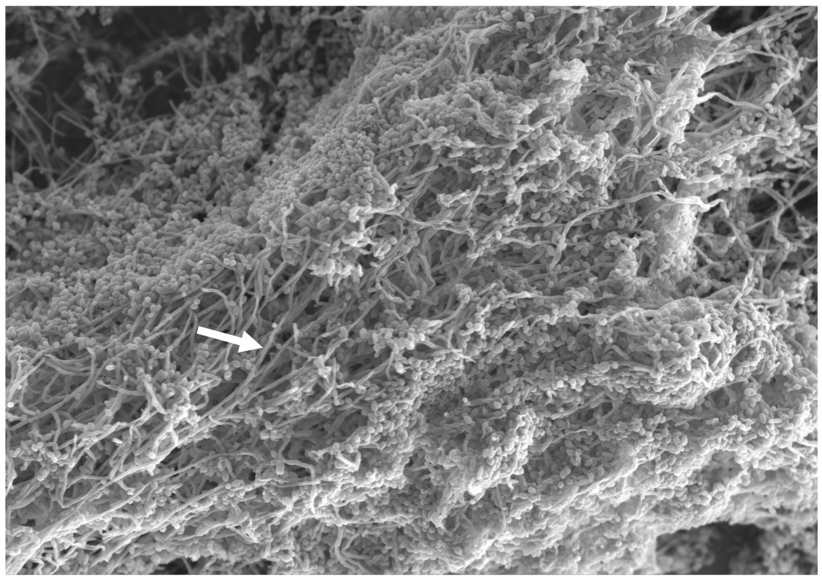
Figura 1. Observaciones por MEB (x 500) de un biofilm de un mes de Brettanomyces bruxellensis desarrollado en un chip de acero inoxidable en medio YPD. La superficie está cubierta de microcolonias que contienen levaduras y células filamentosas (indicadas por la flecha blanca).
Buscando la remoción de biofilms de Brettanomyces bruxellensis
Con la finalidad de evaluar diferentes métodos de sanitización, se evaluaron cinco cepas de B. bruxellensis de diferentes orígenes (Tabla 1) y para cada cepa se formaron biofilms de catorce días en chips de acero inoxidable en un medio sintético (medio Extracto de Levadura – Peptona – Dextrosa (YPD)), comúnmente utilizado para cultivar levaduras en laboratorios de investigación.
Antes de la formación del biofilm, se usaron cultivos iniciadores para asegurarse de que las células estuviesen en los mismos estados fisiológicos, permitiendo la comparación precisa de la habilidad de diferentes cepas para formar biofilms. De hecho, las cinéticas de crecimiento son dependientes de la cepa, siendo la cepa BR17 más lenta comparada a las otras (Tabla 1). Por otro lado, la cepa GS04 fue la de crecimiento más rápido. No obstante, se confirmó la habilidad de todas las cepas investigadas para adherirse y formar un biofilm en chips de acero inoxidable, con una población inicial en el biofilm sobre el chip de alrededor de 106 células/cm² para todas las cepas al cabo de 14 días de incubación (Figura 2).
Tabla 1. Orígenes y parámetros de crecimiento de las cepas de B. bruxellensis.
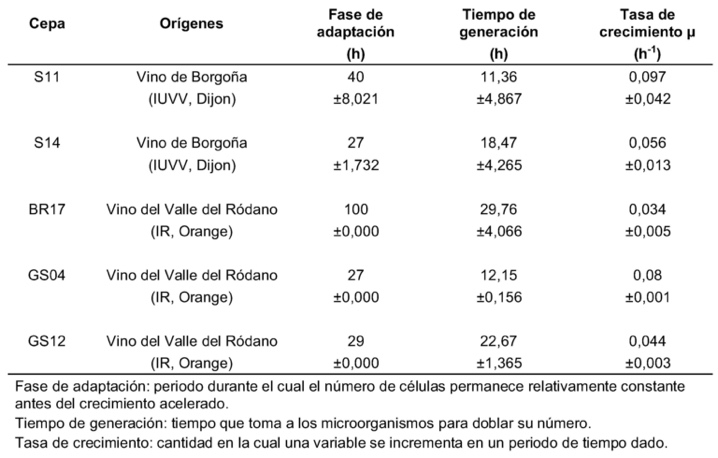
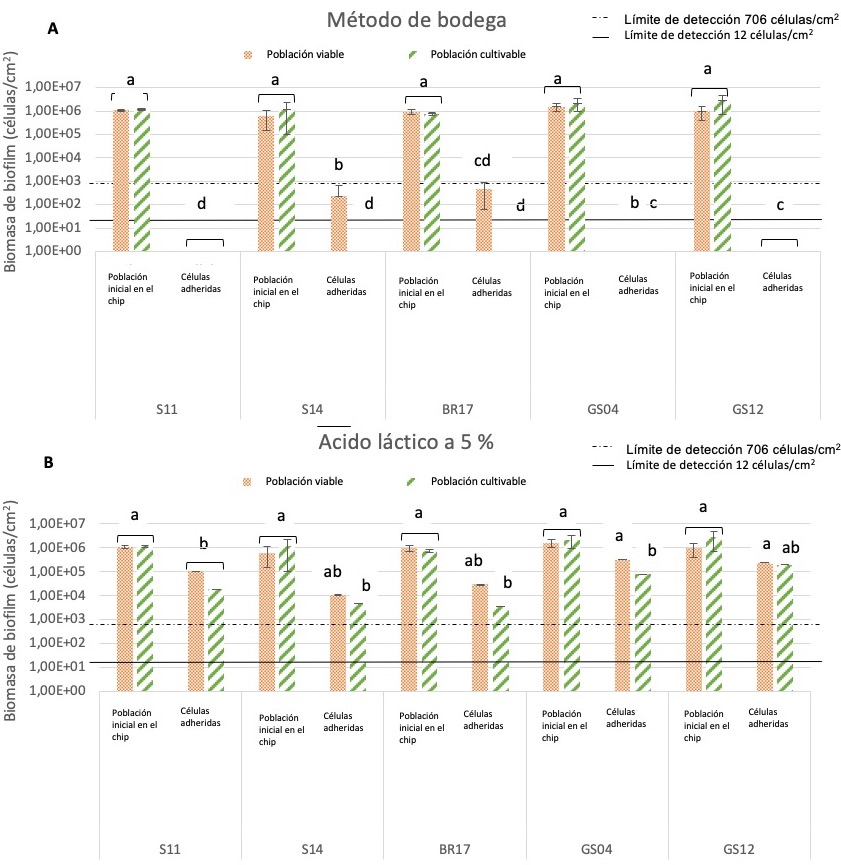
Figura 2. Concentración de poblaciones celulares viables o cultivables (células/cm²) de las cinco cepas de B. bruxellensis al final de los procesos de sanitización por método de bodega (A) y ácido láctico al 5 % (B). El término “células adheridas” corresponde a las células sujetas a la superficie del chip después del tratamiento. Las diferentes letras representan los niveles de significancia (p-valores ≤ 0,05) entre las poblaciones celulares adheridas a los chips. Límite de detección de las técnicas: 706 células/cm² (citómetro: viable; línea punteada), 12 células/cm² (placa: cultivable; línea continua).
. Efecto del método de bodega
El método de bodega, o método de referencia usado por la bodega Inter Rhône, consiste en aplicar una solución de soda cáustica espumosa y peróxido al 5 %. En seguida, los biofilms fueron expuestos a esta solución por 15 min, y las poblaciones en el chip fueron determinadas en medio agar (población cultivable) y por citometría de flujo (población viable) al final del proceso de limpieza. No se detectaron células remanentes en los chips después del tratamiento de las cepas S11, GS04 y GS12, demostrando de este modo la efectividad de dicho método (Figura 2A). Sin embargo, para las cepas BR17 y S14, algunas células viables fueron detectadas por citometría de flujo, revelando así la presencia de células en estado viable pero no cultivable (VPNC)
. Efecto del ácido láctico
Con el fin de investigar un procedimiento alternativo de limpieza para el equipamiento de vinificación, se evaluó un enfoque ecorresponsable. Los biofilms fueron tratados con una solución de ácido láctico al 5 % por 15 min, y las poblaciones en chips de acero inoxidable fueron determinadas como descrito previamente. Los resultados muestran una reducción significativa en la población de células cultivables en los chips después del tratamiento con ácido láctico para todas las cepas, excepto para la cepa GS12 (Figura 2B). Sin embargo, este tratamiento no eliminó todas las células.
Estos ensayos demuestran diferentes comportamientos dependientes de la cepa y del tratamiento. La cepa GS12 pareciese ser ligeramente más tolerante que las otras cepas al tratamiento con ácido láctico. Por otro lado, las cepas BR17 y S14 parecen ser más tolerantes al método de bodega con inducción del estado VPNC, mientras que las poblaciones de las otras tres cepas fueron totalmente eliminadas. Este estado VPNC podría explicar la resistencia de estas dos cepas a diferentes productos químicos y podría ser la causa de la recontaminación de los tanques año a año, ya que las células pueden resucitar desde el estado VPNC cuando las condiciones de estrés desaparecen.
Conclusión
Todas las cepas testeadas, sin importar su origen, fueron capaces de formar biofilms en acero inoxidable (alrededor de 106 células/cm²) luego de 14 días de incubación en medio YPD. Actualmente, la solución de ácido láctico no es un tratamiento lo suficientemente severo como para erradicar B. bruxellensis, pero es un enfoque promisorio, que podría ser mejorado incrementando el tiempo de contacto o la concentración de la solución. El método de bodega demostró su efectividad, pero dos cepas generaron células VPNC después del tratamiento. Estos resultados muestran que, tal como el SO2
NOTES
- Avramova, M., Vallet-Courbin, A., Maupeu, J., Masneuf-Pomarède, I., Albertin, W., (2018). Molecular diagnosis of Brettanomyces bruxellensis’ sulfur dioxide sensitivity through genotype specific method. Frontiers in Microbiology, vol. 9:1260.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., and Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res. Int. 89(Pt 1), 620–630.
- Serpaggi, V., Remize, F., Recorbet, G., Gaudot-Dumas, E., Sequeira-Le Grand, A., Alexandre, H., (2012). Characterization of the ‘Viable but Nonculturable’ (VBNC) state in the wine spoilage yeast Brettanomyces. Food Microbiology, vol. 30, no. 2, 2012, pp. 438–447.
- Tek, E.L., Sundstrom, J.F., Gardner, J.M., Oliver, S.G., Jiranek, V., 2018. Evaluation of the ability of commercial wine yeasts to form biofilms (mats) and adhere to plastic: implications for the microbiota of the winery environment. FEMS Microbiol. Ecol. 94.
- Flemming, H.-C., Wingender, J., (2010). The biofilm matrix. Nat. Rev. Microbiol. 8, 623–633.
- Lebleux, Manon, Abdo, H., Coelho, C., Basmaciyan, L., Albertin, W., Maupeu, J., Laurent, J., Roullier-Gall, C., Alexandre, H., Guilloux-Benatier, M., Weidmann, S., Rousseaux, S., (2020). New Advances on the Brettanomyces bruxellensis biofilm mode of life. International Journal of Food Microbiology, vol. 318, p. 108464.
- Institut Français du Vin, (2016). Guide de bonnes pratiques d’hygiène filière vins. R36.5, p.66-73.
- Serpaggi, V., Remize, F., Recorbet, G., Gaudot-Dumas, E., Sequeira-Le Grand, A., Alexandre, H., (2012). Characterization of the ‘Viable but Nonculturable’ (VBNC) state in the wine spoilage yeast Brettanomyces. Food Microbiology, vol. 30, no. 2, 2012, pp. 438–447.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., and Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res. Int. 89(Pt 1), 620–630.
- Serpaggi, V., Remize, F., Recorbet, G., Gaudot-Dumas, E., Sequeira-Le Grand, A., Alexandre, H., (2012). Characterization of the ‘Viable but Nonculturable’ (VBNC) state in the wine spoilage yeast Brettanomyces. Food Microbiology, vol. 30, no. 2, 2012, pp. 438–447.
- Tek, E.L., Sundstrom, J.F., Gardner, J.M., Oliver, S.G., Jiranek, V., 2018. Evaluation of the ability of commercial wine yeasts to form biofilms (mats) and adhere to plastic: implications for the microbiota of the winery environment. FEMS Microbiol. Ecol. 94.
Citas
- Avramova, M., Vallet-Courbin, A., Maupeu, J., Masneuf-Pomarède, I., Albertin, W., (2018). Molecular diagnosis of Brettanomyces bruxellensis’ sulfur dioxide sensitivity through genotype specific method. Frontiers in Microbiology, vol. 9:1260.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., and Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res. Int. 89(Pt 1), 620–630.
- Serpaggi, V., Remize, F., Recorbet, G., Gaudot-Dumas, E., Sequeira-Le Grand, A., Alexandre, H., (2012). Characterization of the ‘Viable but Nonculturable’ (VBNC) state in the wine spoilage yeast Brettanomyces. Food Microbiology, vol. 30, no. 2, 2012, pp. 438–447.
- Tek, E.L., Sundstrom, J.F., Gardner, J.M., Oliver, S.G., Jiranek, V., 2018. Evaluation of the ability of commercial wine yeasts to form biofilms (mats) and adhere to plastic: implications for the microbiota of the winery environment. FEMS Microbiol. Ecol. 94.
- Flemming, H.-C., Wingender, J., (2010). The biofilm matrix. Nat. Rev. Microbiol. 8, 623–633.
- Lebleux, Manon, Abdo, H., Coelho, C., Basmaciyan, L., Albertin, W., Maupeu, J., Laurent, J., Roullier-Gall, C., Alexandre, H., Guilloux-Benatier, M., Weidmann, S., Rousseaux, S., (2020). New Advances on the Brettanomyces bruxellensis biofilm mode of life. International Journal of Food Microbiology, vol. 318, p. 108464.
- Institut Français du Vin, (2016). Guide de bonnes pratiques d’hygiène filière vins. R36.5, p.66-73.
Estadísticas de artículos
 Consultas: 3647
Descargas
 PDF: 262