
Rassegna dei metodi a base pianta per la valutazione dello stato idrico della vite Fonte: Articolo scientifico “State-of-the-art of tools and methods to assess vine water status” (OENO One, 2019). Questa è la traduzione di un articolo scritto in inglese.

La valutazione dello stato idrico della vite è fondamentale per ottimizzare le pratiche colturali, comprese le strategie di irrigazione, al fine di garantire una viticoltura sostenibile dal punto di vista ambientale ed economico in un contesto di crescente carenza idrica e riscaldamento climatico globale. Lo stato idrico della vite può essere valutato indirettamente, tramite metodi basati sul suolo o sull'atmosfera, o direttamente tramite metodi basati sulla pianta. Questa breve rassegna mira a fornire una prospettiva aggiornata sui risultati della letteratura che confronta i metodi a base pianta. I progressi scientifici riguardanti la regolazione idrica nella vite sono descritti e applicati per discutere i punti di forza e i limiti dei metodi diretti per la valutazione dello stato idrico della vite, in particolare in un contesto di siccità e/o di elevato deficit di tensione di vapore (DPV). Infine, i metodi vengono confrontati secondo criteri operativi che dovrebbero aiutare nella scelta di uno strumento per valutare lo stato idrico della vite per il processo decisionale quotidiano, in particolare nell'irrigazione.
Descrizione dei metodi
Osservazione visiva
La perdita di turgore, dapprima evidente nei viticci e seguita dal rallentamento della crescita vegetativa, è tra i primi sintomi visivi di una pianta che avverte lo stress idrico. Questo rallentamento della crescita del tralcio può essere notato principalmente osservando semplicemente il meristema apicale del tralcio o l'apice della vite. Tuttavia, questo metodo non può essere applicato per determinare le esigenze di irrigazione dopo la fine della crescita dei germogli o una volta che il meristema è stato tagliato. L'osservazione dei sintomi visivi dopo questa data porta spesso a una percezione errata dello stato idrico della vite, in particolare perché non si distinguono gli effetti della carenza di azoto, della siccità o dell'elevato deficit di tensione di vapore. Inoltre, l'osservazione visiva è altamente dipendente dall'operatore e quindi poco riproducibile. Tuttavia, sono stati sviluppati metodi (ad esempio, il metodo dell'apice applicato durante la crescita vegetativa) e strumenti associati come applicazioni per smartphone per facilitarne l'uso (ad esempio, Apex Vigne) per supportare l'impiego dell’osservazione visiva.
Misura del potenziale idrico
Il potenziale idrico della vite (Ѱ) è la tensione (cioè la pressione negativa) sotto la quale l'acqua circola, principalmente attraverso i vasi xilematici, dalle radici all'interfaccia dell’aerea fogliare dove viene vaporizzata. Il potenziale idrico può essere misurato a livello dello stelo (Stem Water Potential - SWP) o al livello del picciolo per riflettere la foglia (Leaf Water Potential - LWP) utilizzando una camera a pressione. L’SWP viene misurato dopo aver racchiuso una foglia in un sacchetto di alluminio per 45-120 minuti prima della misurazione, in modo che si presume che la foglia riduca la sua velocità di traspirazione ed equilibri il suo potenziale idrico con il potenziale idrico dello stelo.
Le misurazioni dell’LWP possono essere eseguite a mezzogiorno (potenziale fogliare a mezzogiorno) o appena prima dell'alba (potenziale fogliare all’alba). Al mezzogiorno solare su una foglia adulta ben esposta, la misura dell’LWP fornisce un'indicazione dello stato idrico della vite nel "caso peggiore". Lo svantaggio di questo protocollo di misurazione è che la lettura del valore può variare rapidamente in funzione delle condizioni ambientali, come nuvole di passaggio o DPV elevato. Prima dell'alba, si presume generalmente che l’LWP e il potenziale idrico del suolo abbiano raggiunto un equilibrio durante la notte. Tuttavia, questa ipotesi è stata recentemente messa in discussione poiché l’LWP rimane influenzato dalla traspirazione notturna e dalla PDV
I valori di LWP comunemente osservati per la vite e la relativa stima empirica dello stato idrico sono riassunti nella Tabella 1. Tuttavia, va tenuto presente che le misurazioni di SWP o LWP possono sovrastimare lo stress idrico realmente sperimentato dalla vite in condizioni di siccità o eventi di DPV elevati. Infatti, la tensione della colonna d'acqua all'interno della vite solitamente aumenta dall'interfaccia suolo-radice a quella foglia-aria (cioè il valore del potenziale idrico diminuisce gradualmente dalla radice alla foglia) per mantenere un flusso d'acqua continuo dalle radici alle foglie. Quando la tensione dello xilema diventa troppo alta all'interfaccia foglia-aria, si possono formare bolle d'aria all'interno dei vasi dello xilema. Questo fenomeno è chiamato cavitazione e porta le foglie a staccarsi gradualmente dal germoglio e a disidratarsi progressivamente in relazione alla domanda atmosferica (DVP). In altre parole, le foglie possono agire come micce idrauliche, il che fa sì che SWP o LWP diventino inferiori al potenziale idrico del germoglio quando il DPV è alto. Pertanto, la raccolta di una delle foglie durante le misurazioni con una camera a pressione può portare a una sovrastima dell'effettivo stress idrico della vite.
Tabella 1. Valori comunemente osservati per il potenziale idrico fogliare all'alba e a mezzogiorno (rispettivamente ѰPD e ѰMD), valori del potenziale idrico dello stelo (Ѱstem) e δ13C in base ai livelli empirici dello stato idrico. Un deficit idrico corrisponde a una riduzione del consumo idrico della vite dovuto alla regolazione idrica che non pregiudica la resa e la qualità del raccolto. Al contrario, lo stress idrico corrisponde a una riduzione dannosa del consumo idrico della vite. Adattato da Carbonneau (1998), Lovisolo et al. (2010, 2016) e van Leeuwen et al. (2009)
ѰPD (MPa) |
ѰMD (MPa) |
Ѱstem (MPa) |
δ13C |
|
|---|---|---|---|---|
Nessun deficit idrico |
> -0,2 |
> -0,9 |
> -0,6 |
< -26 |
Deficit idrico leggero |
-0,2 to -0,3 |
-0,9 to -1,1 |
> -0,6 to -0,9 |
-24,5 to -26 |
Deficit idrico moderato |
-0,3 to -0,5 |
-1,1 to -1,3 |
-0,9 to -1,1 |
-23 to -24,5 |
Da deficit idrico moderato a stress idrico severo |
-0,5 to -0,8 |
-1,3 to -1,4 |
-1,1 to -1,4 |
-21,5 to -23 |
Stress idrico severo |
< -0,8 to -0,9 |
< -1,4 |
< -1,4 |
-21,5 |
Discriminazione degli isotopi del carbonio
La CO2 presente nell'atmosfera contiene due diversi isotopi stabili del carbonio, con il 12C altamente predominante rispetto al 13C. Pertanto il 12C viene captato preferenzialmente dagli enzimi coinvolti nella fotosintesi, ma il rapporto 13C/12C tende ad aumentare man mano che la vite subisce un deficit idrico o azotato. Pertanto, un indice chiamato δ13C, basato sul rapporto 13C/12C, viene misurato sugli zuccheri negli organi della pianta, nelle bacche, nel mosto o nei vini. Esso riflette i regimi di assorbimento di acqua e azoto prima della data di misurazione. Pertanto, non è adatto per la gestione quotidiana dell'irrigazione o per la gestione agronomica, ma può essere tipicamente determinato alla fine della stagione di crescita per considerazioni a posteriori sull'effetto delle strategie di gestione nella stagione precedente sull'assimilazione del carbonio in relazione al deficit azotato e idrico. I valori di δ13C comunemente osservati nella vite e l’associata stima empirica dello stato idrico sono riassunti nella Tabella 1.
Misurazione del flusso di linfa
Il flusso di linfa corrisponde al movimento dell'acqua principalmente attraverso i vasi xilematici dalle radici alle foglie, dove traspira attraverso gli stomi. Fornisce una valutazione del consumo idrico a livello dell'intera vite. Esistono due metodi di misurazione.
Il metodo della sonda di dissipazione termica
Questo metodo utilizza sonde inserite come aghi nella vite. Un ago viene utilizzato come riferimento e l'altro fornisce un riscaldamento continuo. La misura si basa sul principio che la differenza di temperatura tra l'ago riscaldato e quello di riferimento diminuisce all'aumentare del flusso di linfa. È necessario un posizionamento accurato per evitare qualsiasi contatto degli aghi con tessuti non conduttivi. Inoltre, è stato dimostrato che la variazione circonferenziale e radiale del flusso di linfa può portare sia a sottostimare che a sovrastimare il flusso di linfa. Pertanto, il metodo della sonda di dissipazione termica non viene utilizzato per applicazioni commerciali.
Il metodo del bilancio termico dello stelo
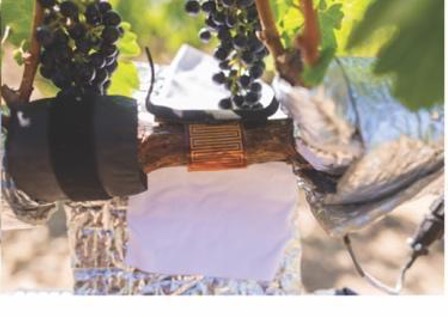
Questo metodo utilizza un manicotto non intrusivo dotato di una resistenza riscaldante affiancata da due termocoppie. Il manicotto è avvolto attorno al tralcio e mantiene una perfetta aderenza tra il tralcio e le termocoppie durante le contrazioni diurne del tralcio (Figura 1). Il calore viene fornito in modo uniforme e radiale su tutta la sezione del tralcio per evitare disturbi dovuti al contatto con tessuti non conduttivi e per integrare eventuali variazioni circonferenziali e radiali del flusso linfatico.
Figura 1. Un'installazione smontata di sensori per la misurazione della linfa con il metodo del bilancio termico.
Criteri di selezione per i metodi a base pianta in base alla loro praticità per supportare il processo decisionale sull'irrigazione in campo
Tabella 2. Selezione dei criteri da prendere in considerazione nella scelta di un metodo a base pianta per misurare lo stato idrico della vite per il supporto decisionale quotidiano nell'irrigazione.
Metodo |
In tempo reale |
Continuità temporale |
Continuità spaziale |
Già utilizzato nei vigneti commerciali |
Fattori importanti da tenere in considerazione per una corretta interpretazione |
|---|---|---|---|---|---|
Osservazione visiva |
Dopo un periodo di latenza |
Discontinuo |
Discontinuo |
Sì |
I sintomi sono visibili dopo l'inizio dello stress idrico |
Potenziale idrico dello stelo o della foglia |
Sì |
Discontinuo |
Discontinuo |
Sì |
Può sovrastimare lo stato idrico della pianta a causa della cavitazione |
Discriminazione degli isotopi del carbonio |
A posteriori |
Rappresenta l’andamento di tutta la stagione |
Discontinuo |
No o molto poco |
Rappresenta non solo l'effetto dell'acqua ma anche quello del deficit di azoto sull'attività fotosintetica della vite |
Flusso di linfa |
Sì |
Continuo |
Discontinuo |
No (dissipazione termica)/ sì (bilancio termico) |
Solo per il metodo di dissipazione termica: la variazione circonferenziale e radiale del flusso di linfa può portare sia a sottostimare che a sovrastimare il flusso di linfa effettivo |
La programmazione dell’irrigazione deve essere reattiva, precisa e preventiva per ottimizzare la rotazione e la durata dell'irrigazione in tutti i blocchi di un grande vigneto. Le misurazioni che supportano il processo decisionale sull'irrigazione dovrebbero fornire informazioni in tempo reale, quasi continue (intervalli di meno di un giorno) e spazialmente rappresentative dello stato idrico della vite. La tabella 2 posiziona i metodi presentati in questo articolo secondo questi tre criteri.
I metodi discontinui a livello temporale (Tabella 2) sono laboriosi e tipicamente poco frequenti. La misurazione continua evita di non rilevare episodi di stress e attenua le variazioni biologiche e ambientali, ma richiede installazioni semipermanenti o permanenti.
Tutti i metodi presentati in questo articolo vengono eseguiti solo su poche piante, il che significa che sono soggetti a problemi di campionamento spaziale (ad esempio, discontinuità spaziale). La sfida è selezionare siti di misurazione rappresentativi dell'intero vigneto per poter estendere il metodo scelto a tutti i blocchi.
La tabella 2 delinea anche i limiti nell'interpretazione e nell'applicazione dei diversi metodi. I sintomi visivi compaiono dopo l'inizio dello stress idrico
In generale, i metodi a base pianta non forniscono una misurazione diretta dell'umidità del suolo o del contenuto di acqua dell'aria (DPV), ma piuttosto mostrano la risposta della vite a questi due fattori al momento della misurazione. Di conseguenza, le misurazioni a base pianta ci consentono di determinare l'effettivo stato idrico della vite, ma dovrebbero essere interpretate congiuntamente al contenuto idrico del suolo o al DPV per adattare le decisioni riguardanti l’irrigazione. Tuttavia, poiché non è possibile determinare se le esigenze idriche della vite sono soddisfatte dalle misurazioni dell'umidità del suolo

Notes
- Rogiers, S.Y., Greer, D.H., Hutton, R.J., Landsberg, J.J., 2009. Does night-time transpiration contribute to anisohydric behaviour in a Vitis vinifera cultivar? J Exp Bot 60, 3751–3763.https://doi.org/10.1093/jxb/erp217
- Carbonneau A., 1998. Aspects qualitatifs, 258 – 276. In Traité d’irrigation, Tiercelin J.R., Tec et Doc Lavoisier éditions.
- Lovisolo, C., Perrone, I., Carra, A., Ferrandino, A., Flexas, J., Medrano, H., Schubert, A., 2010. Drought-induced changes in development and function of grapevine (Vitis spp.) organs and in their hydraulic and non-hydraulic interactions at the whole-plant level: a physiological and molecular update. Functional Plant Biol. 37, 98–116.https://doi.org/10.1071/FP09191
- Lovisolo, C., Lavoie-Lamoureux, A., Tramontini, S., Ferrandino, A., 2016. Grapevine adaptations to water stress: new perspectives about soil/plant interactions. Theor. Exp. Plant Physiol. 28, 53–66.https://doi.org/10.1007/s40626-016-0057-7
- Van Leeuwen, C., Trégoat, O., Choné, X., Bois, B., Pernet, D., Gaudillère, J.P., 2009. Vine water status is a key factor in grape ripening and vintage quality for red Bordeaux wine. How can it be assessed for vineyard management purposes? OENO One 43, 121.https://doi.org/10.20870/oeno-one.2009.43.3.798
- Lebon, E., Pellegrino, A., Louarn, G., Lecoeur, J., 2006. Branch Development Controls Leaf Area Dynamics in Grapevine (Vitis vinifera) Growing in Drying Soil. Annals of Botany 98, 175–185.https://doi.org/10.1093/aob/mcl085
- Charrier, G., Torres-Ruiz, J.M., Badel, E., Burlett, R., Choat, B., Cochard, H., Delmas, C.E.L., Domec, J.-C., Jansen, S., King, A., Lenoir, N., Martin-StPaul, N., Gambetta, G.A., Delzon, S., 2016. Evidence for Hydraulic Vulnerability Segmentation and Lack of Xylem Refilling under Tension. Plant Physiology 172, 1657–1668.https://doi.org/10.1104/pp.16.01079
- Taskos, D., Zioziou, E., Nikolaou, N., Doupis, G., Koundouras, S., 2020. Carbon isotope natural abundance (δ13C) in grapevine organs is modulated by both water and nitrogen supply. OENO One 54, 1183–1199.https://doi.org/10.20870/oeno-one.2020.54.4.3600
- Vergeynst, L.L., Vandegehuchte, M.W., McGuire, M.A., Teskey, R.O., Steppe, K., 2014. Changes in stem water content influence sap flux density measurements with thermal dissipation probes. Trees 28, 949–955.https://doi.org/10.1007/s00468-014-0989-y
- Herrera, J.C., Calderan, A., Gambetta, G.A., Peterlunger, E., Forneck, A., Sivilotti, P., Cochard, H., Hochberg, U., 2022. Stomatal responses in grapevine become increasingly more tolerant to low water potentials throughout the growing season. The Plant Journal 109, 804–815.https://doi.org/10.1111/tpj.15591
Riferimenti bibliografici
- Rogiers, S.Y., Greer, D.H., Hutton, R.J., Landsberg, J.J., 2009. Does night-time transpiration contribute to anisohydric behaviour in a Vitis vinifera cultivar? Journal of Experimental Botany, 60, 3751–3763. https://doi.org/10.1093/jxb/erp217
- Lebon, E., Pellegrino, A., Louarn, G., Lecoeur, J., 2006. Branch Development Controls Leaf Area Dynamics in Grapevine (Vitis vinifera) Growing in Drying Soil. Annals of Botany, 98, 175–185. https://doi.org/10.1093/aob/mcl085
- Charrier, G., Torres-Ruiz, J.M., Badel, E., Burlett, R., Choat, B., Cochard, H., Delmas, C.E.L., Domec, J.-C., Jansen, S., King, A., Lenoir, N., Martin-StPaul, N., Gambetta, G.A., Delzon, S., 2016. Evidence for Hydraulic Vulnerability Segmentation and Lack of Xylem Refilling under Tension. Plant Physiology, 172, 1657–1668. https://doi.org/10.1104/pp.16.01079
- Taskos, D., Zioziou, E., Nikolaou, N., Doupis, G., Koundouras, S., 2020. Carbon isotope natural abundance (δ13C) in grapevine organs is modulated by both water and nitrogen supply. OENO One, 54, 1183–1199. https://doi.org/10.20870/oeno-one.2020.54.4.3600
- Vergeynst, L.L., Vandegehuchte, M.W., McGuire, M.A., Teskey, R.O., Steppe, K., 2014. Changes in stem water content influence sap flux density measurements with thermal dissipation probes. Trees, 28, 949–955. https://doi.org/10.1007/s00468-014-0989-y
- Herrera, J.C., Calderan, A., Gambetta, G.A., Peterlunger, E., Forneck, A., Sivilotti, P., Cochard, H., Hochberg, U., 2022. Stomatal responses in grapevine become increasingly more tolerant to low water potentials throughout the growing season. The Plant Journal, 109, 804–815. https://doi.org/10.1111/tpj.15591
- Carbonneau A., 1998. Aspects qualitatifs, 258 – 276. In Traité d’irrigation, Tiercelin J.R., Tec et Doc Lavoisier éditions.
- Lovisolo, C., Perrone, I., Carra, A., Ferrandino, A., Flexas, J., Medrano, H., Schubert, A., 2010. Drought-induced changes in development and function of grapevine (Vitis spp.) organs and in their hydraulic and non-hydraulic interactions at the whole-plant level: a physiological and molecular update. Functional Plant Biology, 37, 98–116. https://doi.org/10.1071/FP09191
- Lovisolo, C., Lavoie-Lamoureux, A., Tramontini, S., Ferrandino, A., 2016. Grapevine adaptations to water stress: new perspectives about soil/plant interactions. Theor. Exp. Plant Physiology, 28, 53–66. https://doi.org/10.1007/s40626-016-0057-7
- van Leeuwen, C., Trégoat, O., Choné, X., Bois, B., Pernet, D., Gaudillère, J.P., 2009. Vine water status is a key factor in grape ripening and vintage quality for red Bordeaux wine. How can it be assessed for vineyard management purposes? OENO One, 43, 121. https://doi.org/10.20870/oeno-one.2009.43.3.798
Statistiche articolo
 Viste: 4060
Downloads
 XML: 53