
Revisão dos métodos baseados nas plantas para avaliar o estado hídrico da videira Extraído do artigo de investigação “State-of-the-art of tools and methods to assess vine water status” (OENO One, 2019). Esta é uma tradução de um artigo técnico originalmente escrito em inglês.

A avaliação do estado hídrico da videira é crucial para otimizar as práticas de cultura, incluindo estratégias de irrigação, para garantir uma viticultura ambiental e economicamente sustentável, num contexto de crescente escassez de água e aquecimento global. O estado hídrico da videira pode ser avaliado indiretamente, através de métodos baseados no solo ou na atmosfera, ou diretamente através de métodos baseados nas plantas. Esta breve revisão visa fornecer uma perspetiva atualizada sobre os achados da literatura que comparam métodos baseados nas plantas. Os avanços científicos relativos à regulação hidráulica nas vinhas são delineados e aplicados para discutir os pontos fortes e limitações dos métodos diretos de avaliação ao estado hídrico da vinha, nomeadamente no contexto de seca e/ou do elevado défice de pressão de vapor (DPV). Por fim, os métodos são comparados de acordo com critérios operacionais que deverão auxiliar na escolha de uma ferramenta de avaliação do estado hídrico da videira para a tomada de decisões diárias, principalmente na irrigação.
Descrição dos métodos
Observação visual
A perda de turgidez, primeiramente percetível nas gavinhas e seguida pelo abrandamento do crescimento vegetativo, é um os primeiros sintomas visuais de uma planta que deteta o stress hídrico. Este abrandamento de crescimento dos gomos, pode ser notado primariamente observando simplesmente o meristema apical ou o ápice das videiras. No entanto, este método não pode ser aplicado para determinar as necessidades de irrigação depois do fim do crescimento do gomo, ou uma vez que o meristema é cortado. A observação dos sintomas visuais após esta data conduz frequentemente a uma perceção errada do estado hídrico da videira, sobretudo porque não se distinguem os efeitos do défice de azoto, seca ou do défice alto de pressão de vapor. Além disso, a observação visual é altamente dependente do operador e, portanto, não muito reprodutível. No entanto, foram desenvolvidos métodos (por exemplo, o método do ápice, aplicado durante o crescimento vegetativo) e ferramentas associadas, como aplicações para smartphones para facilitar a sua utilização (como por exemplo, Apex Vigne) para apoiar o uso de observações visuais.
Avaliação do potencial hídrico
O potencial hídrico da videira (Ѱ) é a tensão (ou seja, a pressão negativa) sob a qual a água circula, principalmente através dos vasos do xilema, das raízes para a interface aérea foliar onde é vaporizado. O potencial hídrico pode ser medido no nível do caule (PHC) ou ao nível do pecíolo para refletir a folha (PHF) usando uma bomba de pressão. O PHC é medido depois de envolver uma folha num saco de alumínio durante 45 a 120 min antes da avaliação, supõe-se então que a folha reduza a sua taxa de transpiração e equilibra o seu potencial hídrico com o potencial hídrico do caule.
As avaliações do PHF podem ser efetuadas ao meio-dia (potencial foliar do meio-dia) ou pouco antes do nascer do sol (potencial foliar antes do amanhecer). Ao meio-dia solar de um adulto bem exposto, as avaliações do PHF fornecem uma indicação do estado hídrico da videira no “pior estado”. A desvantagem deste protocolo de avaliação é que a leitura do valor pode variar rapidamente em função das condições ambientais, como nuvens passageiras ou alto DPV. Antes do nascer do sol, geralmente assume-se que o PHF e o potencial hídrico do solo atingiram um equilíbrio durante a noite. No entanto, esta suposição foi recentemente contestada, uma vez que o PHF continua a ser afetado pela transpiração noturna e pela DPV
Os valores geralmente observados do PHF da videira e a estimativa empírica do estado hídrico associado estão resumidos na Tabela 1. No entanto, deve-se ter em conta que as avaliações do PHC ou do PHF podem sobrestimar o stress hídrico realmente experimentado pela videira em eventos de seca ou alto DPV. Na realidade, a tensão da coluna de água no interior da videira aumenta das interfaces solo-raiz para as interfaces folha-ar (isto é, o valor do potencial hídrico diminui gradualmente de raiz para folha) para manter um fluxo contínuo de água das raízes para as folhas. Quando a tensão do xilema fica muito alta na interface da folha-ar, bolhas de ar podem formar-se dentro dos vasos de xilema. Este fenómeno chama-se cavitação e resulta em folhas que se desligam gradualmente do rebento e se desidratam progressivamente em relação à procura atmosférica (DPV). Por outras palavras, as folhas podem funcionar como fusíveis hidráulicos, o que faz com que o PHC ou o PHF se tornem inferiores ao potencial hídrico do gomo quando o DPV é alto. Por isso, a colheita de uma das folhas durante as avaliações com uma bomba de pressão pode levar a uma sobreavaliação do stress hídrico real da videira.
Tabela 1. Valores geralmente observados de potenciais hídricos foliares antes do amanhecer e ao meio-dia (ѰPD e ѰMD, respetivamente), valores de potencial hídrico do caule (Ѱcaule) e δ13C de acordo com os níveis empíricos do nível da água. Um défice hídrico corresponde a uma redução do consumo de água da videira devido a uma regulação hidráulica que não prejudica o rendimento e a qualidade da colheita. Em contrapartida, o stress hídrico corresponde a uma redução prejudicial do consumo de água da videira. Adaptado de Carbonneau (1998), Lovisolo et al. (2010, 2016) e van Leeuwen et al. (2009)
ѰPD (MPa) |
ѰMD (MPa) |
Ѱcaule (MPa) |
δ13C |
|
|---|---|---|---|---|
Sem défice hídrico |
> -0.2 |
> -0.9 |
> -0.6 |
< -26 |
Défice hídrico leve |
-0,2 a -0,3 |
-0,9 a -1.1 |
> -0.6 a -0,9 |
-24,5 a -26 |
Défice hídrico moderado |
-0,3 a -0,5 |
-1,1 a -1.3 |
-0,9 a -1.1 |
-23 a -24.5 |
Défice hídrico moderado a stress hídrico severo |
-0,5 a -0,8 |
-1,3 a -1.4 |
-1.1 a -1.4 |
-21,5 a -23 |
Stress hídrico severo |
< -0,8 a -0,9 |
< -1.4 |
< -1.4 |
-21.5 |
Discriminação de isótopos de carbono
Dois isótopos de carbono estáveis, diferentes do CO2, estão presentes na atmosfera, sendo o 12C altamente predominantes sobre 13C. Assim, o 12C é preferencialmente captado pelas enzimas envolvidas na fotossíntese, mas a relação 13C/12C tende a aumentar à medida que a videira sofre um défice de água ou de azoto. Assim, um índice chamado δ13C que se baseia na relação de 13C/12C é medido em açúcares nos órgãos vegetais, bagos, mostos ou vinhos. Este reflete os regimes de absorção de água e de azoto antes da data da avaliação. Assim, não está bem-adaptado para irrigação diária ou gestão agronómica, mas normalmente pode ser realizado no final da época de crescimento para uma reflexão posterior sobre o efeito das estratégias de gestão da estação anterior na assimilação do carbono em relação aos défices de azoto e água. Os valores de δ13C geralmente observados na videira e a estimativa empírica do estado hídrico associado estão resumidos na Tabela 1.
Avaliação do fluxo de seiva
O fluxo de seiva corresponde ao movimento da água, principalmente através dos vasos do xilema desde as raízes até às folhas, onde é exsudada através dos estomas. Fornece uma avaliação do uso da água em todo o nível da videira. Existem dois métodos de avaliação.
O método da sonda de dissipação térmica
Este método utiliza sondas inseridas como agulhas na videira. Uma agulha é usada como referência e a outra proporciona aquecimento contínuo. A medida baseia-se no princípio de que a diferença de temperatura entre o aquecido e a agulha de referência diminui quando o fluxo de seiva aumenta. É necessária uma inserção cuidadosa para evitar qualquer contacto das agulhas com tecidos não condutores. Além disso, demonstrou-se que a variação circunferencial e radial do fluxo de seiva pode conduzir a subestimativas e superestimavas do fluxo de seiva. Desta forma, o método da sonda de dissipação térmica não é utilizado para aplicação comercial.
O método do equilíbrio térmico do caule
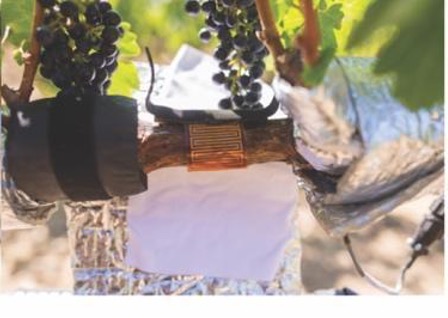
Este método utiliza uma manga não intrusiva equipada com uma resistência de aquecimento ladeada por dois termopares. A manga é enrolada à volta do caule e mantém um ajuste confortável entre o caule e os termopares durante as contrações diurnas do caule (Figura 1). O calor é fornecido de forma uniforme e radial em toda a secção do caule para evitar perturbações devido ao contacto com tecidos não condutores e para integrar qualquer variação circunferencial e radial do fluxo de seiva.
Figura 1. Uma instalação de sensores para avaliação do fluxo de seiva com o método do equilíbrio térmico.
Critérios de seleção dos métodos baseados nas plantas, tendo em conta a sua praticidade para apoiar a tomada de decisões de irrigação no terreno
Tabela 2. Seleção dos critérios a ter em conta, na escolha de um método baseado nas plantas para medir o estado hídrico da videira, para o apoio à decisão diária no regadio.
Método |
Tempo real |
Apoio temporal |
Apoio espacial |
Já usado em vinhas comerciais |
Fatores importantes a ter em conta para uma interpretação adequada |
|---|---|---|---|---|---|
Observação visual |
Após um período de latência |
Descontínuo |
Descontínuo |
Sim |
Os sintomas são visíveis depois do stress hídrico ter começado |
Potencial hídrico do caule ou folha |
Sim |
Descontínuo |
Descontínuo |
Sim |
Pode sobrestimar o estado hídrico da planta devido à cavitação |
Discriminação dos isótopos de carbono |
À posteriori |
Representa a trajetória de toda a época |
Descontínuo |
Não ou muito poucos |
Não representa apenas o efeito da água, mas também o do défice de azoto na atividade fotossintética da videira |
Fluxo de seiva |
Sim |
Contínuo |
Descontínuo |
Não (dissipação térmica) / sim (equilíbrio térmico) |
Apenas para o método de dissipação térmica: a variação circunferencial e radial do fluxo de seiva pode conduzir a subestimativas e superestimavas do fluxo real de seiva |
A programação da irrigação deve ser responsiva, precisa e preventiva para otimizar a rotação e duração da irrigação em todas as parcelas de um grande vinhedo. As avaliações que suportam o processo de tomada de decisão de irrigação devem fornecer informações em tempo real, quase contínuas (intervalos inferiores a um dia) e informações espacialmente representativas do estado hídrico da videira. A tabela 2 posiciona os métodos apresentados neste artigo de acordo com estes três critérios.
Os métodos de suporte temporal discretos (Tabela 2) são trabalhosos e tipicamente pouco frequentes. A avaliação contínua evita os episódios de stress em falta e amortece a variação biológica e ambiental dos tampões, mas requer instalações semipermanentes ou permanentes.
Todos os métodos apresentados neste artigo são realizados em apenas algumas plantas, o que significa que são propensos a questões de amostragem espacial (isto é, suporte espacial discreto). O desafio é selecionar locais de avaliação que sejam representativos de todo um vinhedo para poder expandir o método escolhido para todas as parcelas.
A tabela 2 também descreve as limitações na interpretação e aplicação dos diferentes métodos. Os sintomas visuais aparecem após o início do stress hídrico
Em geral, os métodos à baseados nas plantas não fornecem uma avaliação direta da humidade do solo ou do teor de água do ar (DPV), mas mostram a resposta da videira a estes dois fatores no momento da avaliação. Consequentemente, as avaliações à base de plantas permitem determinar o estado real da água da videira, mas devem ser interpretadas em conjunto com o teor de água do solo ou com o DPV para adaptar as decisões de irrigação. No entanto, uma vez que não é possível determinar se as necessidades de água da videira são satisfeitas com as avaliações da humidade do solo

Notes
- Rogiers, S.Y., Greer, D.H., Hutton, R.J., Landsberg, J.J., 2009. Does night-time transpiration contribute to anisohydric behaviour in a Vitis vinifera cultivar? J Exp Bot 60, 3751–3763.https://doi.org/10.1093/jxb/erp217
- Carbonneau A., 1998. Aspects qualitatifs, 258 – 276. In Traité d’irrigation, Tiercelin J.R., Tec et Doc Lavoisier éditions.
- Lovisolo, C., Perrone, I., Carra, A., Ferrandino, A., Flexas, J., Medrano, H., Schubert, A., 2010. Drought-induced changes in development and function of grapevine (Vitis spp.) organs and in their hydraulic and non-hydraulic interactions at the whole-plant level: a physiological and molecular update. Functional Plant Biol. 37, 98–116.https://doi.org/10.1071/FP09191
- Lovisolo, C., Lavoie-Lamoureux, A., Tramontini, S., Ferrandino, A., 2016. Grapevine adaptations to water stress: new perspectives about soil/plant interactions. Theor. Exp. Plant Physiol. 28, 53–66.https://doi.org/10.1007/s40626-016-0057-7
- Van Leeuwen, C., Trégoat, O., Choné, X., Bois, B., Pernet, D., Gaudillère, J.P., 2009. Vine water status is a key factor in grape ripening and vintage quality for red Bordeaux wine. How can it be assessed for vineyard management purposes? OENO One 43, 121.https://doi.org/10.20870/oeno-one.2009.43.3.798
- Lebon, E., Pellegrino, A., Louarn, G., Lecoeur, J., 2006. Branch Development Controls Leaf Area Dynamics in Grapevine (Vitis vinifera) Growing in Drying Soil. Annals of Botany 98, 175–185.https://doi.org/10.1093/aob/mcl085
- Charrier, G., Torres-Ruiz, J.M., Badel, E., Burlett, R., Choat, B., Cochard, H., Delmas, C.E.L., Domec, J.-C., Jansen, S., King, A., Lenoir, N., Martin-StPaul, N., Gambetta, G.A., Delzon, S., 2016. Evidence for Hydraulic Vulnerability Segmentation and Lack of Xylem Refilling under Tension. Plant Physiology 172, 1657–1668.https://doi.org/10.1104/pp.16.01079
- Taskos, D., Zioziou, E., Nikolaou, N., Doupis, G., Koundouras, S., 2020. Carbon isotope natural abundance (δ13C) in grapevine organs is modulated by both water and nitrogen supply. OENO One 54, 1183–1199.https://doi.org/10.20870/oeno-one.2020.54.4.3600
- Vergeynst, L.L., Vandegehuchte, M.W., McGuire, M.A., Teskey, R.O., Steppe, K., 2014. Changes in stem water content influence sap flux density measurements with thermal dissipation probes. Trees 28, 949–955.https://doi.org/10.1007/s00468-014-0989-y
- Herrera, J.C., Calderan, A., Gambetta, G.A., Peterlunger, E., Forneck, A., Sivilotti, P., Cochard, H., Hochberg, U., 2022. Stomatal responses in grapevine become increasingly more tolerant to low water potentials throughout the growing season. The Plant Journal 109, 804–815.https://doi.org/10.1111/tpj.15591
Referências
- Rogiers, S.Y., Greer, D.H., Hutton, R.J., Landsberg, J.J., 2009. Does night-time transpiration contribute to anisohydric behaviour in a Vitis vinifera cultivar? Journal of Experimental Botany, 60, 3751–3763. https://doi.org/10.1093/jxb/erp217
- Lebon, E., Pellegrino, A., Louarn, G., Lecoeur, J., 2006. Branch Development Controls Leaf Area Dynamics in Grapevine (Vitis vinifera) Growing in Drying Soil. Annals of Botany, 98, 175–185. https://doi.org/10.1093/aob/mcl085
- Charrier, G., Torres-Ruiz, J.M., Badel, E., Burlett, R., Choat, B., Cochard, H., Delmas, C.E.L., Domec, J.-C., Jansen, S., King, A., Lenoir, N., Martin-StPaul, N., Gambetta, G.A., Delzon, S., 2016. Evidence for Hydraulic Vulnerability Segmentation and Lack of Xylem Refilling under Tension. Plant Physiology, 172, 1657–1668. https://doi.org/10.1104/pp.16.01079
- Taskos, D., Zioziou, E., Nikolaou, N., Doupis, G., Koundouras, S., 2020. Carbon isotope natural abundance (δ13C) in grapevine organs is modulated by both water and nitrogen supply. OENO One, 54, 1183–1199. https://doi.org/10.20870/oeno-one.2020.54.4.3600
- Vergeynst, L.L., Vandegehuchte, M.W., McGuire, M.A., Teskey, R.O., Steppe, K., 2014. Changes in stem water content influence sap flux density measurements with thermal dissipation probes. Trees, 28, 949–955. https://doi.org/10.1007/s00468-014-0989-y
- Herrera, J.C., Calderan, A., Gambetta, G.A., Peterlunger, E., Forneck, A., Sivilotti, P., Cochard, H., Hochberg, U., 2022. Stomatal responses in grapevine become increasingly more tolerant to low water potentials throughout the growing season. The Plant Journal, 109, 804–815. https://doi.org/10.1111/tpj.15591
- Carbonneau A., 1998. Aspects qualitatifs, 258 – 276. In Traité d’irrigation, Tiercelin J.R., Tec et Doc Lavoisier éditions.
- Lovisolo, C., Perrone, I., Carra, A., Ferrandino, A., Flexas, J., Medrano, H., Schubert, A., 2010. Drought-induced changes in development and function of grapevine (Vitis spp.) organs and in their hydraulic and non-hydraulic interactions at the whole-plant level: a physiological and molecular update. Functional Plant Biology, 37, 98–116. https://doi.org/10.1071/FP09191
- Lovisolo, C., Lavoie-Lamoureux, A., Tramontini, S., Ferrandino, A., 2016. Grapevine adaptations to water stress: new perspectives about soil/plant interactions. Theor. Exp. Plant Physiology, 28, 53–66. https://doi.org/10.1007/s40626-016-0057-7
- van Leeuwen, C., Trégoat, O., Choné, X., Bois, B., Pernet, D., Gaudillère, J.P., 2009. Vine water status is a key factor in grape ripening and vintage quality for red Bordeaux wine. How can it be assessed for vineyard management purposes? OENO One, 43, 121. https://doi.org/10.20870/oeno-one.2009.43.3.798
Estatísticas do item
 Acessos: 4060
Downloads
 XML: 45