
La producción de compuestos odorantes por parte de las levaduras del vino depende del control de su equilibrio redox intracelular Información extraída del artículo de investigación “Redox cofactor metabolctism in Saccharomyces cerevisiae and its impa on the production of alcoholic fermentation end-products” (Food Research International, 2023). Esta es una traducción de un artículo técnico escrito originalmente en inglés.

Las levaduras del vino producen etanol y una miríada de metabolitos durante la fermentación, dando al vino final su impronta organoléptica única. La compleja red de rutas metabólicas que conducen a la producción de estos compuestos odorantes depende fuertemente de reacciones enzimáticas redox que utilizan los cofactores NAD(H) y NADP(H). En este trabajo, investigamos control y el balance de cofactores redox de dos cepas de levadura genéticamente emparentadas a lo largo de la fermentación alcohólica, y monitoreamos la producción de metabolitos clave.
Introducción
Las levaduras del vino producen etanol y una miríada de metabolitos durante la fermentación, dando al vino final su impronta organoléptica única. La compleja red de rutas metabólicas que conducen a la producción de estos compuestos odorantes depende fuertemente de reacciones enzimáticas redox que utilizan los cofactores NAD(H) y NADP(H). En este trabajo, investigamos control y el balance de cofactores redox de dos cepas de levadura genéticamente emparentadas a lo largo de la fermentación alcohólica, y monitoreamos la producción de metabolitos clave.
Cinética de la fermentación alcohólica
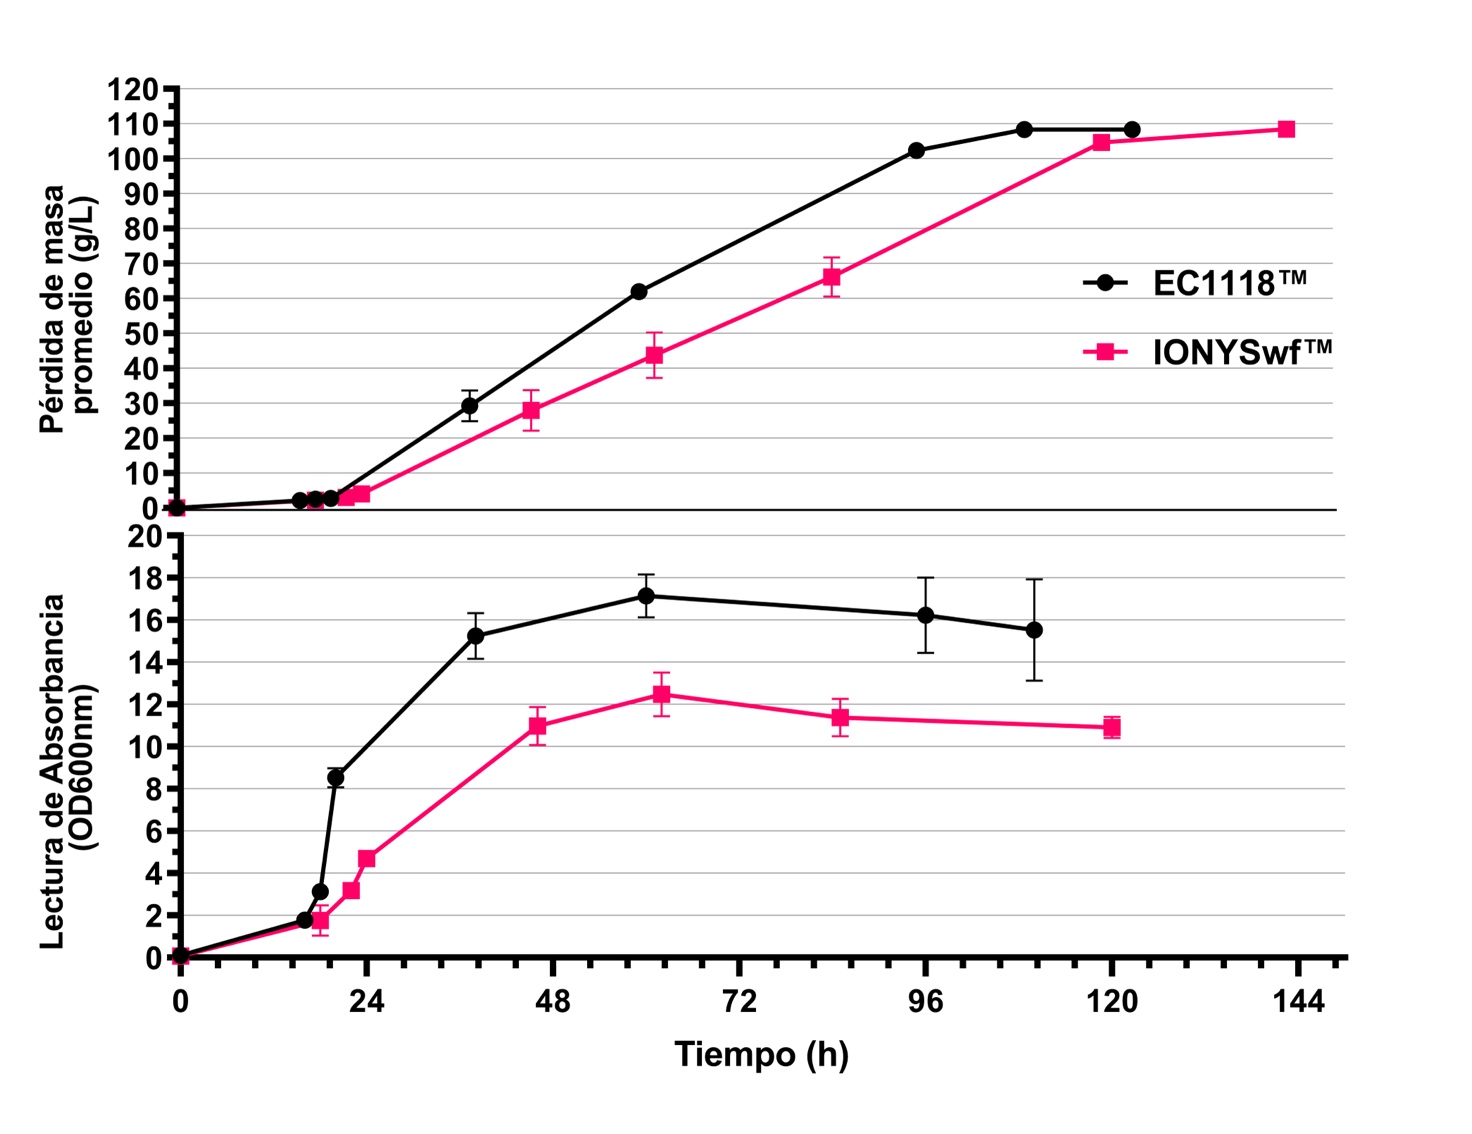
Se comparó la cinética de fermentación de dos cepas de Saccharomyces cerevisiae genéticamente emparentadas, EC1118™ y IONYSwf™
Se identificaron los instantes correspondientes a las etapas clave de la fermentación. Las etapas consideradas fueron las siguientes: entrada en la fase de crecimiento exponencial de las levaduras, fase medio-exponencial, entrada en la fase estacionaria (que también corresponde a un tercio de la compleción de la fermentación), dos tercios de la compleción de la fermentación, y el final de la fermentación (marcado por una concentración de azúcares por debajo de los 5 g/L). Ambas cepas de levadura produjeron perfiles de fermentación típicos y alcanzaron la sequedad, pero IONYSwf™ fermentó a un ritmo más lento que EC1118™, tomándole 120 horas alcanzar la sequedad mientras que la última requirió 110 horas.
Figura 1. Cinética de fermentación y crecimiento de las cepas de levadura EC1118™ y IONYSwf™ en mosto sintético con una concentración de azúcares de 230 g/L.
Dinámica de la concentración de NAD(H) intracelular a lo largo de la fermentación
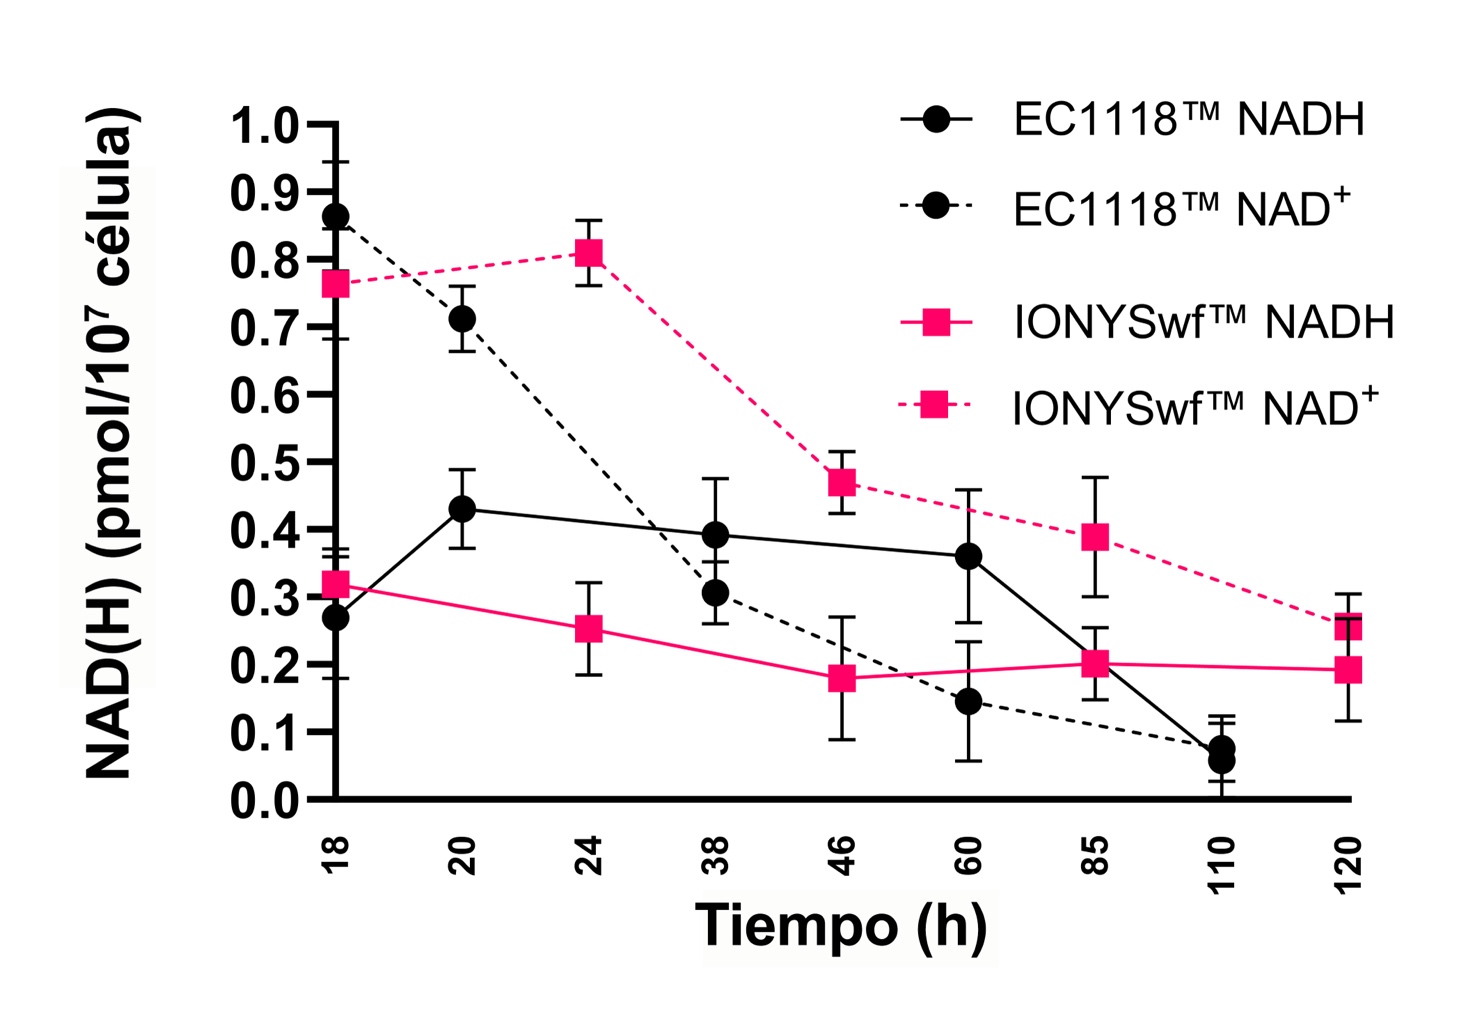
Se monitorearon las concentraciones intracelulares de los cofactores redox NAD+, NADH, NADP+ y NADPH en las etapas clave de la fermentación mencionadas anteriormente. Mientras se encontró que las concentraciones y proporciones de NADP+ y NADPH fueron razonablemente estables a lo largo del tiempo (datos no mostrados), aquellas de NAD+ y de NADH variaron significativamente (Figura 2). En efecto, la concentración total de NAD(H) (i.e. la suma de [NAD+] y [NADH]) fue estable solo hasta la fase medio-exponencial, luego de la cual disminuyó drásticamente en ambas cepas, pero con una diferencia marcada. De hecho, la concentración de NAD(H) cayó antes en EC1118™. De forma similar, la proporción NAD+/NADH cayó antes en EC1118™, revelando que IONYSwf™ logró mantener una concentración más alta de NAD+ que EC1118™ después del punto medio-exponencial.
Típicamente, se reporta en la literatura que la concentración de NAD(H) y la relación NAD+/NADH son estables a lo largo de la fermentación
Figura 2. Dinámica de la concentración intracelular de NAD+ y NADH a lo largo de la fermentación en las cepas EC1118™ y IONYSwf™.
Producción de metabolitos primarios
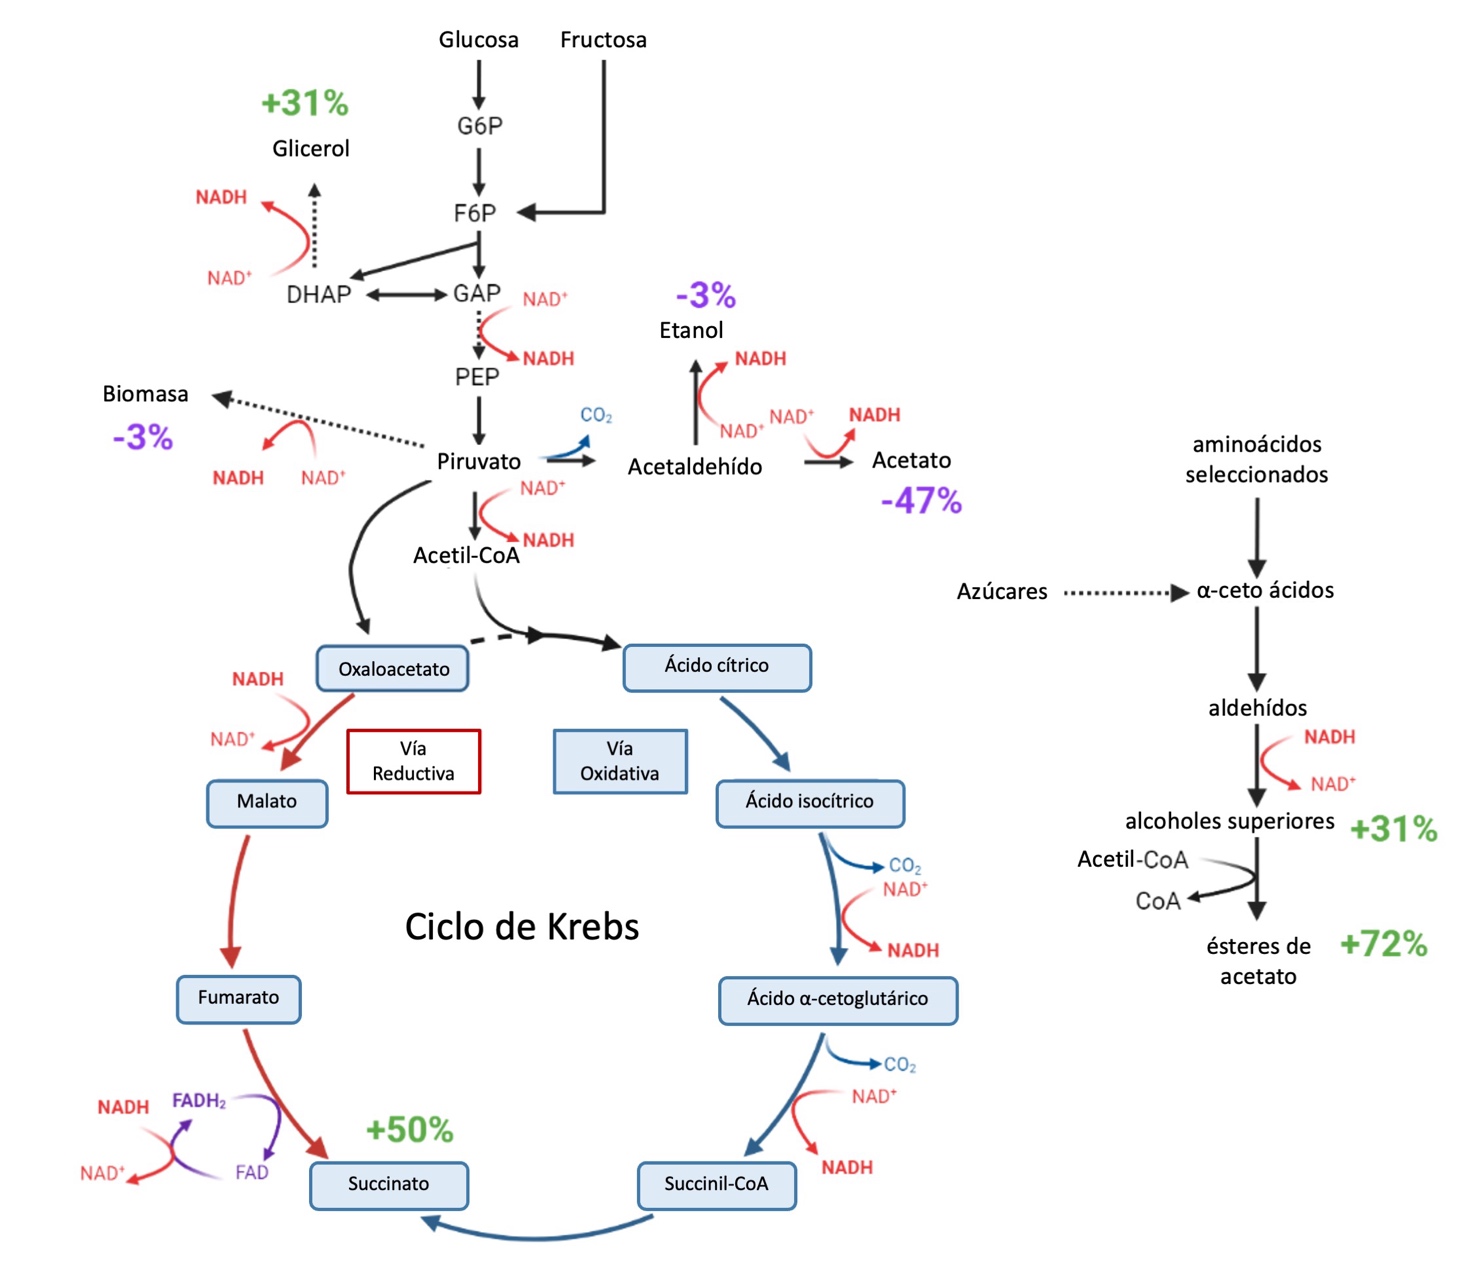
Para confirmar que el control redox específico de cada cepa conduce a una impronta metabólica única, se cuantificaron los metabolitos primarios producidos por EC1118™ y IONYSwf™ al final de la fermentación (Tabla 1). Para entender la diferencia en los flujos metabólicos entre ambas cepas, se muestran los resultados en un esquema que representa las rutas metabólicas principales y los productos finales de relevancia enológica (Figura 3). Los resultados muestran claramente que IONYSwf™ produce más glicerol, menos etanol, menos ácido acético, y más ácido succínico así como también más alcoholes superiores y más ésteres de acetato. Mientras que estos resultados confirman aquellos reportados con anterioridad
Tabla 1. Concentraciones de metabolitos y biomasas producidas por EC1118™ y IONYSwf™ al final de la fermentación alcohólica en mosto sintético bajo condiciones completamente anaeróbicas.
EC1118™ |
IONYSwf™ |
|
|---|---|---|
Azúcares residuales (g/L) |
0,37 ± 0,03 a |
2,42 ± 1,93 a |
Biomasa (g/L) |
4,56 ± 0,05 a |
4,43 ± 0,02 a |
Etanol (g/L) |
104,34 ± 1,97 a |
100,57 ± 1,49 b |
CO2 (g/L) |
108,27 ± 0,13 a |
107,93 ± 0,07 a |
Glicerol (g/L) |
6,78 ± 0,01 b |
9,83 ± 0,11 a |
Ácido succínico (g/L) |
0,46 ± 0,03 b |
0,92 ± 0,03 a |
Ácido acético (g/L) |
0,66 ± 0,02 a |
0,45 ± 0,01 b |
Suma de los principales alcoholes superiores* (g/L) |
0,24 ± 0,00 b |
0,32 ± 0,00 a |
Suma de los principales ésteres de acetato** (mg/L) |
1,32 ± 0,1 b |
4,75 ± 0,3 a |
*Suma del Butan-1-ol, Propan-1-ol, 2-metilpropan-1-ol, 3-metilbutan-1-ol y 2-feniletanol; **Suma del 3-metilbutil acetato y 2-feniletil acetato.
Figura 3. Rutas metabólicas simplificadas que conducen a la formación de los principales productos finales de interés enológico. Las reacciones que involucran cofactores redox están representadas en rojo. El incremento o disminución porcentual de productos finales en IONYSwf™ en comparación con EC1118™ se indican en verde y violeta, respectivamente, al lado de los nombres de los productos. Las flechas punteadas indican múltiples pasos. Abreviaciones: G6P: Glucosa-6-Fosfato, F6P: Fructosa-6-Fosfato, GAP: Gliceraldehído-3-Fosfato, PEP: Fosfoenolpiruvato, DHAP: Dihidroxiacetona Fosfato.
Conclusión
Este estudio arroja nuevas luces sobre el control redox intracelular en la levadura Saccharomyces cerevisiae. En particular, muestra que la concentración de NAD(H) disminuye a lo largo del tiempo, lo que se correlaciona con el decrecimiento del ritmo de la fermentación alcohólica después de la fase medio-exponencial, ya que hay menos cofactores disponibles para asistir a la catálisis enzimática de azúcares. Mientras que las intrincadas conexiones entre la producción de metabolitos primarios y los factores redox eran ya conocidas, este estudio demostró una clara especificidad de las cepas. En el caso de IONYSwf™, su alta producción inherente de glicerol tiene un efecto de bola de nieve en el metabolismo. De los datos generados en este estudio, puede suponerse que condiciones que conllevan a producciones de glicerol incluso más altas probablemente disminuirán aún más el etanol y aumentarán la producción de subproductos deseados, tales como el ácido succínico y compuestos odorantes de la fermentación. Futuras investigaciones deberían enfocarse en mejorar nuestro entendimiento de la dinámica de la producción y degradación de NAD(H) bajo diversas condiciones ambientales y el nexo con la producción de metabolitos de relevancia enológica.
Los autores agradecen a la Stellenbosch University y a la National Research Foundation of South Africa (UID: 145290) por financiar la beca de J.D. Duncan, así como a Lallemand Oenology y a Winetech por apoyar conjuntamente este proyecto de investigación.
Notes
- Tilloy, V., Ortiz-Julien, A., & Dequin, S. (2014). Reduction of ethanol yield and improvement of glycerol formation by adaptive evolution of the wine yeast Saccharomyces cerevisiae under hyperosmotic conditions. Applied and Environmental Microbiology, 80(8), 2623–2632. https://doi.org/10.1128/AEM.03710-13
- IONYSwf™ technical sheet. www.lallemandwine.com
- Bakker, B. M., Overkamp, K. M., Van Maris, A. J., Kötter, P., Luttik, M. A., Van Dijken, J. P., & Pronk, J. T. (2001). Stoichiometry and compartmentation of NADH metabolism in Saccharomyces cerevisiae. FEMS Microbiology Reviews, 25(1), 15–37. https://doi.org/10.1016/S0168-6445(00)00039-5
- Richard, P., Teusink, B., Westerhoff, H. V., & van Dam, K. (1993). Around the growth phase transition S. cerevisiae’s make-up favours sustained oscillations of intracellular metabolites. FEBS Letters, 318(1), 80–82. https://doi.org/10.1016/0014-5793(93)81332-T
- Verduyn, C., Zomerdijk, T. P., van Dijken, J. P., & Scheffers, W. A. (1984). Continuous measurement of ethanol production by aerobic yeast suspensions with an enzyme electrode. Applied Microbiology and Biotechnology, 19(3), 181–185. https://doi.org/10.1007/BF00256451
- IONYSwf™ technical sheet. www.lallemandwine.com
Citas
- Tilloy, V., Ortiz-Julien, A., & Dequin, S. (2014). Reduction of ethanol yield and improvement of glycerol formation by adaptive evolution of the wine yeast Saccharomyces cerevisiae under hyperosmotic conditions. Applied and Environmental Microbiology, 80(8), 2623–2632.
- https://doi.org/10.1128/AEM.03710-13
- IONYSwf™ technical sheet. www.lallemandwine.com
- Bakker, B. M., Overkamp, K. M., Van Maris, A. J., Kötter, P., Luttik, M. A., Van Dijken, J. P., & Pronk, J. T. (2001). Stoichiometry and compartmentation of NADH metabolism in Saccharomyces cerevisiae. FEMS Microbiology Reviews, 25(1), 15–37. https://doi.org/10.1016/S0168-6445(00)00039-5
- Richard, P., Teusink, B., Westerhoff, H. V., & van Dam, K. (1993). Around the growth phase transition S. cerevisiae’s make-up favours sustained oscillations of intracellular metabolites. FEBS Letters, 318(1), 80–82. https://doi.org/10.1016/0014-5793(93)81332-T
- Verduyn, C., Zomerdijk, T. P., van Dijken, J. P., & Scheffers, W. A. (1984). Continuous measurement of ethanol production by aerobic yeast suspensions with an enzyme electrode. Applied Microbiology and Biotechnology, 19(3), 181–185. https://doi.org/10.1007/BF00256451
Estadísticas de artículos
 Consultas: 3126