
La production de composés aromatiques par les levures œnologiques dépend de la gestion de leur équilibre d’oxydoréduction intracellulaire Article prenant sa source de l’article de recherche Redox cofactor metabolism in Saccharomyces cerevisiae and its impact on the production of alcoholic fermentation end-products” (Food Research International, 2023). Ceci est une traduction d'un article technique originellement écrit en anglais.

Les levures œnologiques produisent de l'éthanol et une myriade d'autres métabolites pendant la fermentation, donnant au vin fini son empreinte organoleptique unique. Le réseau complexe de voies métaboliques conduisant à la production de ces composés aromatiques dépend en grande partie de réactions enzymatiques d'oxydoréduction qui utilisent les cofacteurs NAD(H) et NADP(H). Dans ce travail, nous avons étudié l'équilibre des cofacteurs d’oxydoréduction et la gestion de deux souches de levure génétiquement apparentées tout au long de la fermentation alcoolique, et avons surveillé leur production de métabolites clés.
Cinétique de la fermentation alcoolique
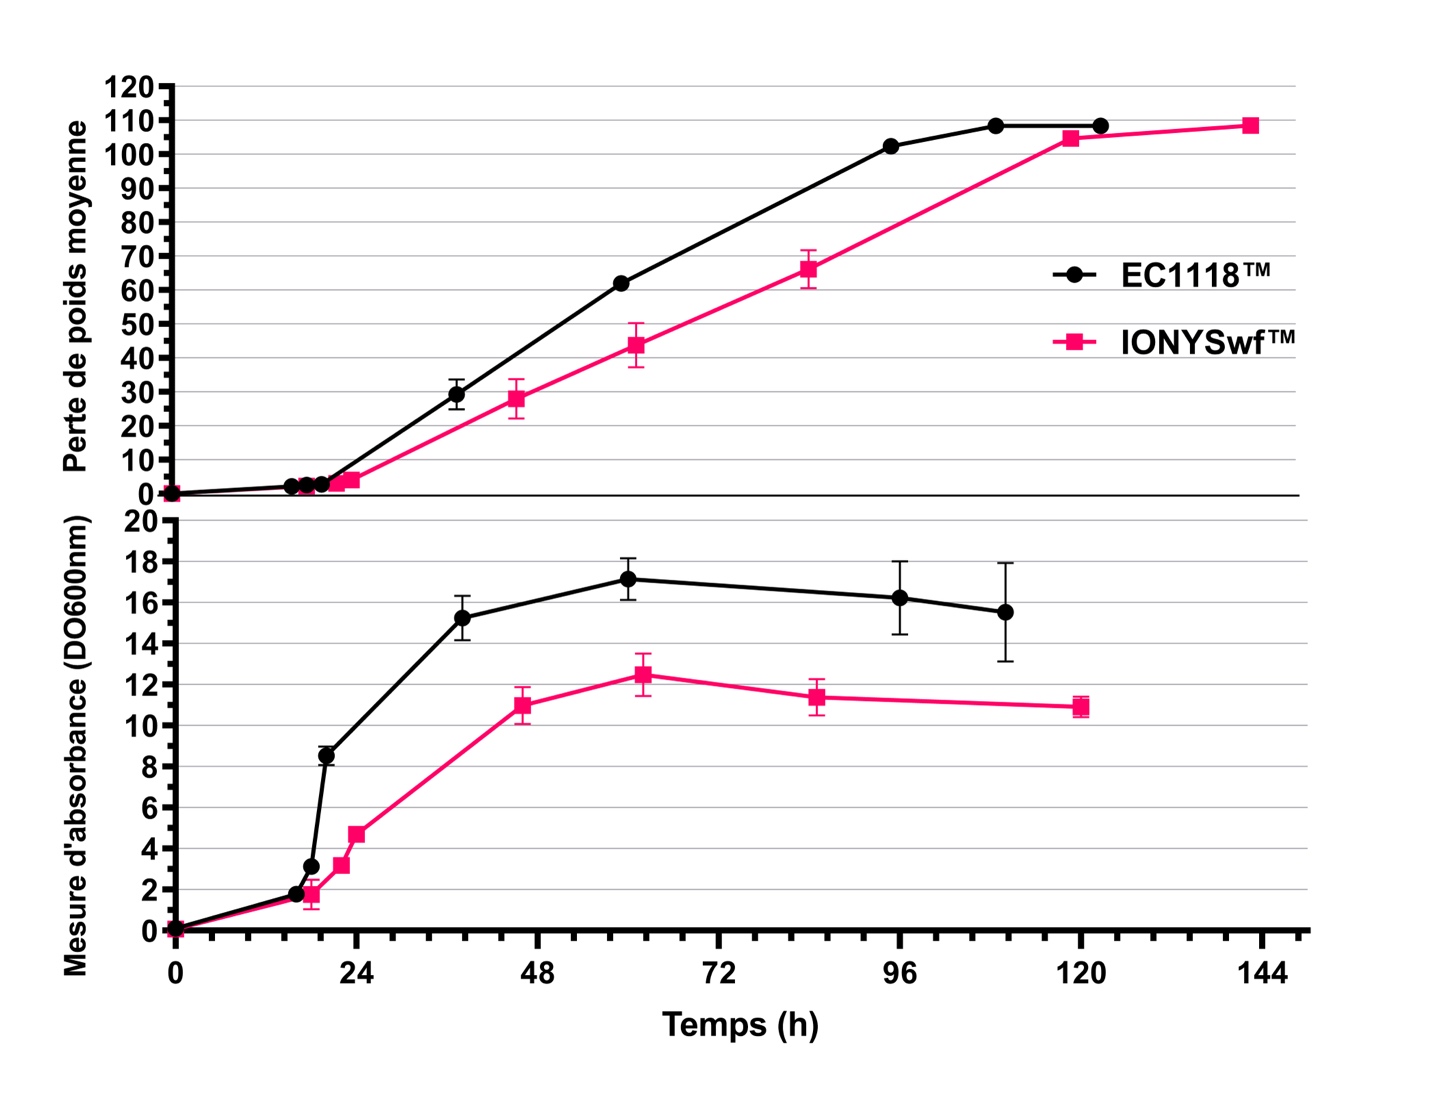
La cinétique de fermentation de deux souches génétiquement apparentées de Saccharomyces cerevisiae, EC1118™ et IONYSwf™
Les temps correspondant aux étapes clés de la fermentation ont été identifiés. Les étapes retenues sont les suivantes : entrée dans la phase exponentielle de croissance de la levure, milieu de phase exponentielle, entrée dans la phase stationnaire (qui correspond également au tiers de la fermentation), les deux tiers de la fermentation et la fin de la fermentation (marquée par une concentration en sucres inférieure à 5 g/L). Les deux souches de levure ont produit des profils de fermentation typiques et ont permis d’obtenir un vin sec, mais IONYSwf™ a fermenté à un rythme plus lent que EC1118™, mettant 120 heures pour rendre le vin sec, alors que cette dernière a eu besoin de 110 heures.
Figure 1. Cinétique de fermentation et croissance des levures des souches EC1118™ et IONYSwf™ dans du moût de raisin synthétique contenant 230 g/L de sucres.
Dynamique de la concentration intracellulaire en NAD(H) tout au long de la fermentation
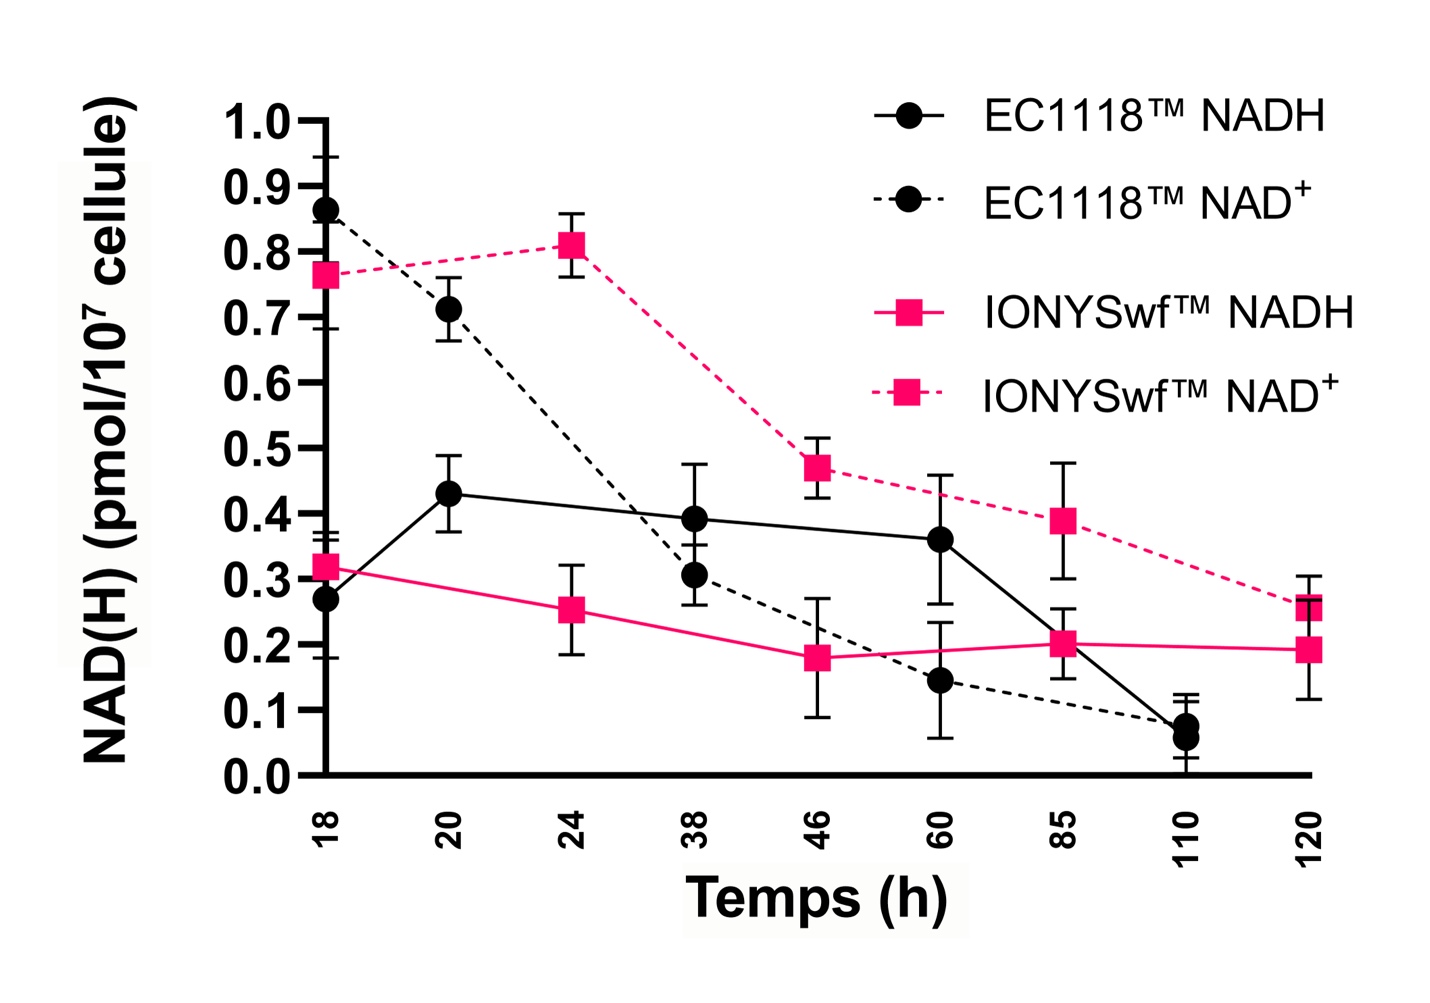
Les concentrations intracellulaires des cofacteurs d'oxydoréduction NAD+, NADH, NADP+ et NADPH ont été déterminées aux étapes clés de la fermentation mentionnées ci-dessus. Alors que les concentrations et les ratios de NADP+ et de NADPH se sont avérés relativement stables dans le temps (données non présentées), ceux de NAD+ et de NADH ont varié de manière significative (Figure 2). En effet, la concentration totale de NAD(H) (c'est-à-dire la somme de [NAD+] et de [NADH]) n’est stable que jusqu'à la moitié de la phase exponentielle, après quoi elle diminue drastiquement dans les deux souches, mais avec une différence marquée. En effet, la concentration en NAD(H) a chuté plus tôt dans l'EC1118™. De même, le rapport NAD+/NADH a chuté plus tôt dans l'EC1118™ révélant que la souche IONYSwf™ a réussi à maintenir une concentration de NAD+ plus élevée que l'EC1118™ durant la deuxième moitié de la phase exponentielle.
La littérature indique généralement que la concentration de NAD(H) et le rapport NAD+/NADH sont stables tout au long de la fermentation
Figure 2. Dynamique de la concentration intracellulaire en NAD+ et NADH tout au long de la fermentation chez les souches EC1118™ et IONYSwf™.
Production des principaux métabolites
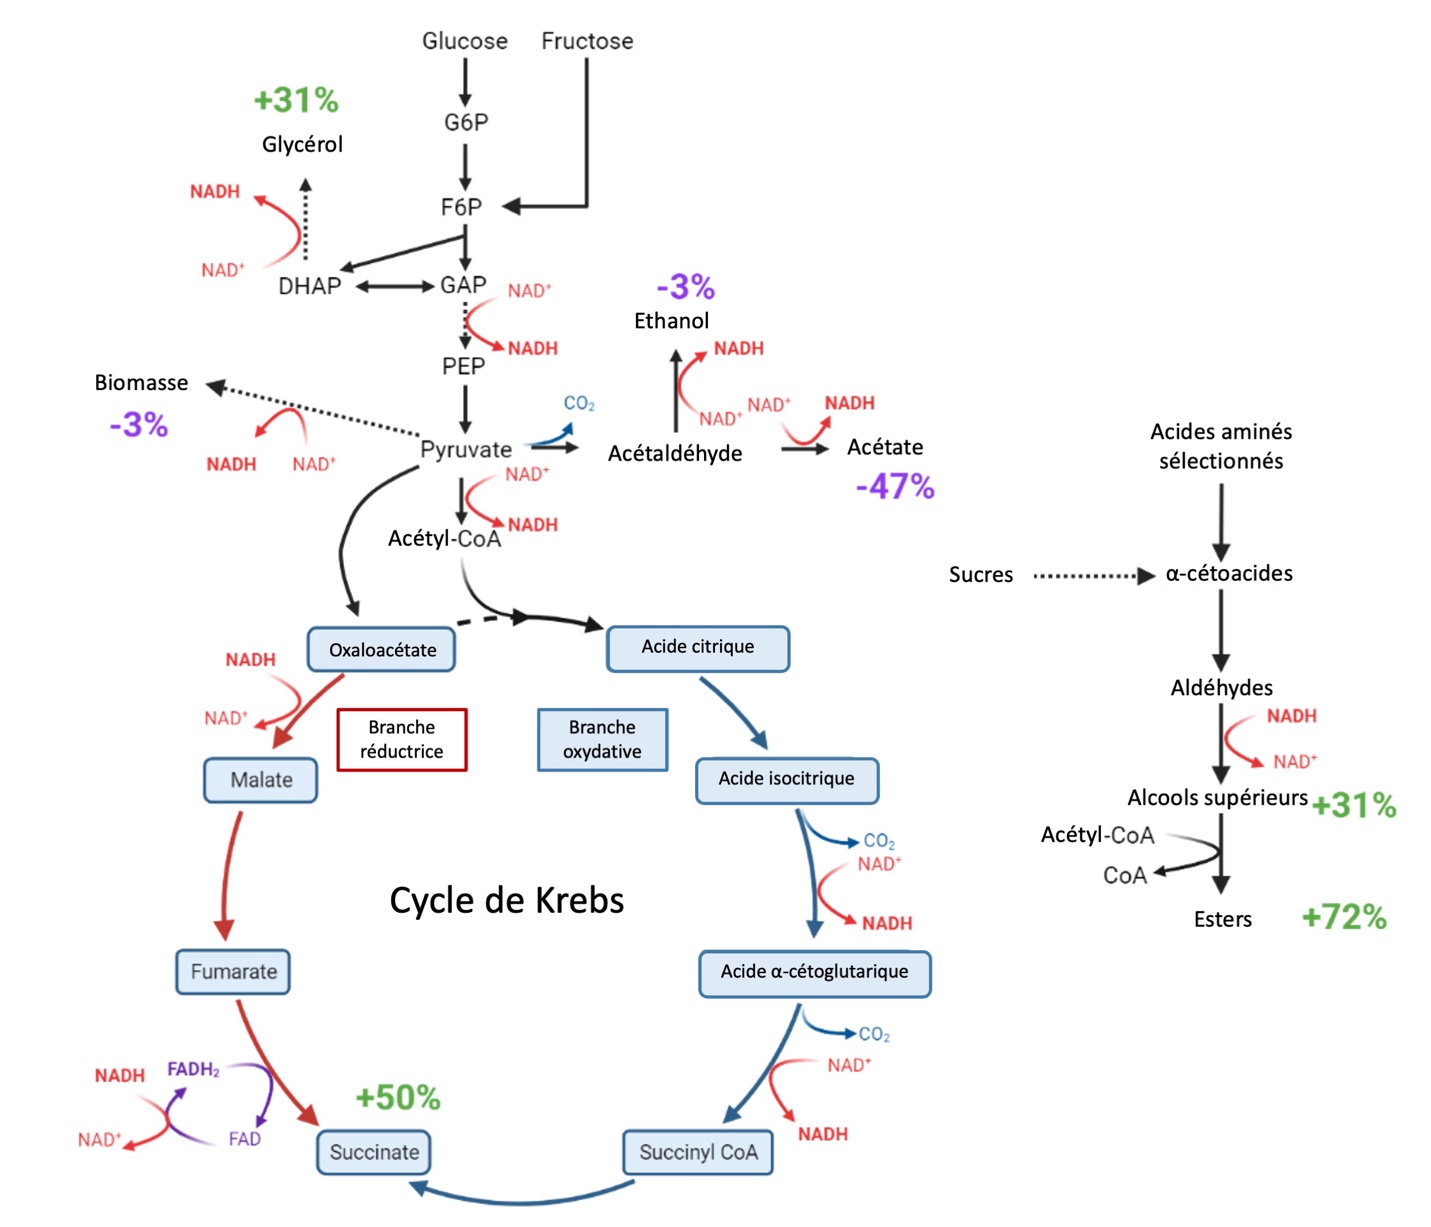
Pour confirmer que la gestion de l’oxydoréduction spécifique à une souche de levure donnée conduit à des empreintes métaboliques uniques, les principaux métabolites produits par EC1118™ et IONYSwf™ ont été quantifiés à la fin de la fermentation (Tableau 1). Afin de comprendre la différence de flux métaboliques entre les deux souches, les résultats sont présentés sur un schéma montrant les principales voies et les produits finaux d'intérêt œnologique (Figure 3). Les résultats montrent clairement que la souche IONYSwf™ produit plus de glycérol, moins d'éthanol, moins d'acide acétique et plus d'acide succinique ainsi que plus d'alcools supérieurs et d'esters d’acétate. Si ces résultats confirment ceux précédemment rapportés
Tableau 1. Concentrations des métabolites et de la biomasse produits à la fin de la fermentation alcoolique dans du moût de raisin synthétique en conditions totalement anaérobies par EC1118™ et IONYSwf™
EC1118™ |
IONYSwf™ |
|
|---|---|---|
Sucres résiduels (g/L) |
0,37 ± 0,03 a |
2,42 ± 1,93 a |
Biomasse (g/L) |
4,56 ± 0,05 a |
4,43 ± 0,02 a |
Éthanol (g/L) |
104,34 ± 1,97 a |
100,57 ± 1,49 b |
CO2 (g/L) |
108,27 ± 0,13 a |
107,93 ± 0,07 a |
Glycérol (g/L) |
6,78 ± 0,01 b |
9,83 ± 0,11 a |
Acide succinique (g/L) |
0,46 ± 0,03 b |
0,92 ± 0,03 a |
Acide acétique (g/L) |
0,66 ± 0,02 a |
0,45 ± 0,01 b |
Somme des principaux alcools supérieurs* (g/L) |
0,24 ± 0,00 b |
0,32 ± 0,00 a |
Somme des principaux esters d’acétate** (mg/L) |
1,32 ± 0,1 b |
4,75 ± 0,3 a |
*Somme de : Butan-1-ol, Propan-1-ol, 2-méthylpropan-1-ol, 3-méthylbutan-1-ol et 2-phényléthanol ;
**Somme d'acétate de 3-méthylbutyle et d'acétate de 2-phényléthyle.
Figure 3. Voies métaboliques simplifiées conduisant à la formation des principaux produits finaux d'intérêt œnologique. Les réactions qui impliquent des cofacteurs d'oxydoréduction sont représentées en rouge. Le pourcentage d'augmentation ou de diminution des produits finaux dans IONYSwf™ par rapport à EC1118™ est indiqué en vert et en violet, respectivement, à côté des noms des produits finaux. Les flèches en pointillés indiquent les étapes multiples. Abréviations : G6P : Glycose-6-Phosphate, F6P : Fructose-6-Phosphate, GAP : Glycéraldéhyde-3-Phosphate, PEP : Phosphoénolpyruvate, DHAP : Dihydroxyacétone Phosphate.
Conclusion
Cette étude apporte un nouvel éclairage sur la gestion de l'oxydoréduction intracellulaire chez la levure Saccharomyces cerevisiae. Elle montre notamment que la concentration en NAD(H) diminue avec le temps, ce qui est à mettre en corrélation avec la diminution de la vitesse de la fermentation alcoolique après la phase mi-exponentielle puisque moins de cofacteurs sont disponibles pour aider à la dégradation enzymatique des sucres. Bien que le lien complexe entre la production de métabolites primaires et les cofacteurs d'oxydoréduction soit connu, cette étude a clairement démontré une spécificité liée à la souche. Dans le cas de la souche IONYSwf™, sa forte production de glycérol a un effet boule de neige métabolique. D'après les données générées par cette étude, on peut supposer que les conditions conduisant à une production de glycérol encore plus élevée sont susceptibles de réduire davantage la production d’éthanol et d'augmenter la production de co-produits souhaités tels que l'acide succinique et les composés aromatiques fermentaires. Les recherches futures devront se concentrer sur l'amélioration de notre compréhension de la dynamique de la production et de la dégradation du NAD(H) dans diverses conditions environnementales et sur le lien avec la production de métabolites d'intérêt œnologique.
Les auteurs remercient l'Université de Stellenbosch et la National Research Foundation of South Africa (UID : 145290) pour le financement de la bourse de J.D. Duncan, ainsi que Lallemand Œnologie et Winetech pour leur soutien conjoint au projet de recherche.
Notes
- Tilloy, V., Ortiz-Julien, A., & Dequin, S. (2014). Reduction of ethanol yield and improvement of glycerol formation by adaptive evolution of the wine yeast Saccharomyces cerevisiae under hyperosmotic conditions. Applied and Environmental Microbiology, 80(8), 2623–2632. https://doi.org/10.1128/AEM.03710-13
- IONYSwf™ technical sheet. www.lallemandwine.com
- Bakker, B. M., Overkamp, K. M., Van Maris, A. J., Kötter, P., Luttik, M. A., Van Dijken, J. P., & Pronk, J. T. (2001). Stoichiometry and compartmentation of NADH metabolism in Saccharomyces cerevisiae. FEMS Microbiology Reviews, 25(1), 15–37. https://doi.org/10.1016/S0168-6445(00)00039-5
- Richard, P., Teusink, B., Westerhoff, H. V., & van Dam, K. (1993). Around the growth phase transition S. cerevisiae’s make-up favours sustained oscillations of intracellular metabolites. FEBS Letters, 318(1), 80–82. https://doi.org/10.1016/0014-5793(93)81332-T
- Verduyn, C., Zomerdijk, T. P., van Dijken, J. P., & Scheffers, W. A. (1984). Continuous measurement of ethanol production by aerobic yeast suspensions with an enzyme electrode. Applied Microbiology and Biotechnology, 19(3), 181–185. https://doi.org/10.1007/BF00256451
- IONYSwf™ technical sheet. www.lallemandwine.com
Références
- Tilloy, V., Ortiz-Julien, A., & Dequin, S. (2014). Reduction of ethanol yield and improvement of glycerol formation by adaptive evolution of the wine yeast Saccharomyces cerevisiae under hyperosmotic conditions. Applied and Environmental Microbiology, 80(8), 2623–2632.
- https://doi.org/10.1128/AEM.03710-13
- IONYSwf™ technical sheet. www.lallemandwine.com
- Bakker, B. M., Overkamp, K. M., Van Maris, A. J., Kötter, P., Luttik, M. A., Van Dijken, J. P., & Pronk, J. T. (2001). Stoichiometry and compartmentation of NADH metabolism in Saccharomyces cerevisiae. FEMS Microbiology Reviews, 25(1), 15–37. https://doi.org/10.1016/S0168-6445(00)00039-5
- Richard, P., Teusink, B., Westerhoff, H. V., & van Dam, K. (1993). Around the growth phase transition S. cerevisiae’s make-up favours sustained oscillations of intracellular metabolites. FEBS Letters, 318(1), 80–82. https://doi.org/10.1016/0014-5793(93)81332-T
- Verduyn, C., Zomerdijk, T. P., van Dijken, J. P., & Scheffers, W. A. (1984). Continuous measurement of ethanol production by aerobic yeast suspensions with an enzyme electrode. Applied Microbiology and Biotechnology, 19(3), 181–185. https://doi.org/10.1007/BF00256451
Statistiques de l'article
 Vues: 3126