
Pode a compostagem de folhas de videira reduzir o inóculo primário de Plasmopara viticola na vinha? Língua original do artigo: francês.

O míldio, causado pelo oomiceto Plasmopara viticola, é uma das doenças mais nocivas que afectam a vinha. As questões actuais relacionadas com a utilização de produtos fitofarmacêuticos estão a levar à avaliação de estratégias de proteção que incluam medidas de prevenção de riscos epidémicos. O projeto PROFIL visa prolongar o período de luta contra este oomiceto até ao inverno.
Redução do inóculo primário de Plasmopara viticola através de medidas profilácticas
No outono, a reprodução sexual da P. viticola resulta na formação de oósporos nas folhas. Uma vez no solo, estas formas invernantes podem sobreviver durante vários anos e constituir o inóculo primário para futuras epidemias. A redução do inóculo primário através da exportação de folhagem da vinha após a colheita (por exemplo, arrancando-a ou recolhendo-a do solo) é uma forma de limitar a acumulação de inóculo ao longo do tempo e reduzir a pressão epidémica. Uma das acções do projeto consiste em avaliar o efeito da compostagem sobre a viabilidade dos oósporos, de modo a que a matéria orgânica higienizada possa ser devolvida à vinha.
Efeito das altas temperaturas na viabilidade dos oósporos de P. viticola
Durante o processo de compostagem, a matéria orgânica é decomposta por vários processos físico-químicos e pela ação de microrganismos, resultando num aumento da temperatura. Durante esta fase dita "termofílica", a temperatura do composto pode ultrapassar os 70°C. De todas as reacções que podem ser observadas no composto, o efeito da temperatura é o mais fácil de controlar
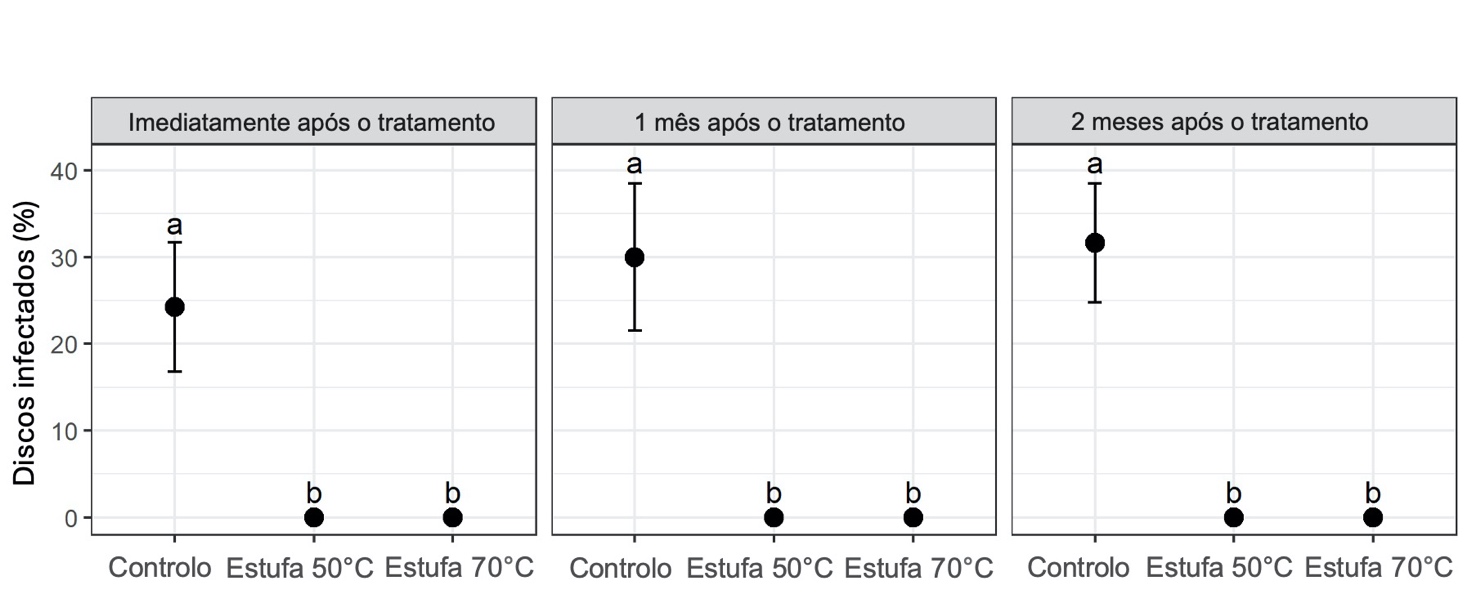
Para avaliar o efeito das temperaturas elevadas na capacidade germinativa dos oósporos, folhas de videira (casta Merlot) contendo oósporos foram colhidas no outono de 2021 e divididas (sob a forma de discos de folhas) em 15 amostras (3 modalidades e 5 réplicas). Durante um mês, 5 das amostras foram colocadas numa estufa húmida a 50°C e outras 5 nas mesmas condições, mas a 70°C. As últimas 5, como controlos, foram mantidas em condições naturais no solo durante o mesmo período. Foi utilizado um bioensaio para analisar a capacidade germinativa dos oósporos logo que saíram da estufa (março), um mês depois (abril) e dois meses depois (maio): i) as folhas foram colocadas em condições de temperatura e humidade óptimas para a germinação dos oósporos (i.e, 20°C, escuridão e imersão em água); ii) os zoósporos libertados são capturados utilizando discos de folhas de videira susceptíveis (discos armadilha) e iii) a viabilidade dos oósporos é avaliada através da caraterização do grau de infeção dos discos de folhas incubados em condições óptimas de esporulação (i.e., 20°C alternando 12 h dia/12 h noite, 100 % de humidade)
Em média, 28,6 ± 4,2 % (desvio padrão) dos discos da armadilha de controlo (n = 350) estavam infectados. Estes resultados parecem, portanto, indicar que os oósporos de P. viticola perdem a sua capacidade germinativa quando expostos durante um mês a temperaturas como as encontradas durante a fase termofílica do composto.
Efeito da temperatura na viabilidade dos oósporos em condições reais
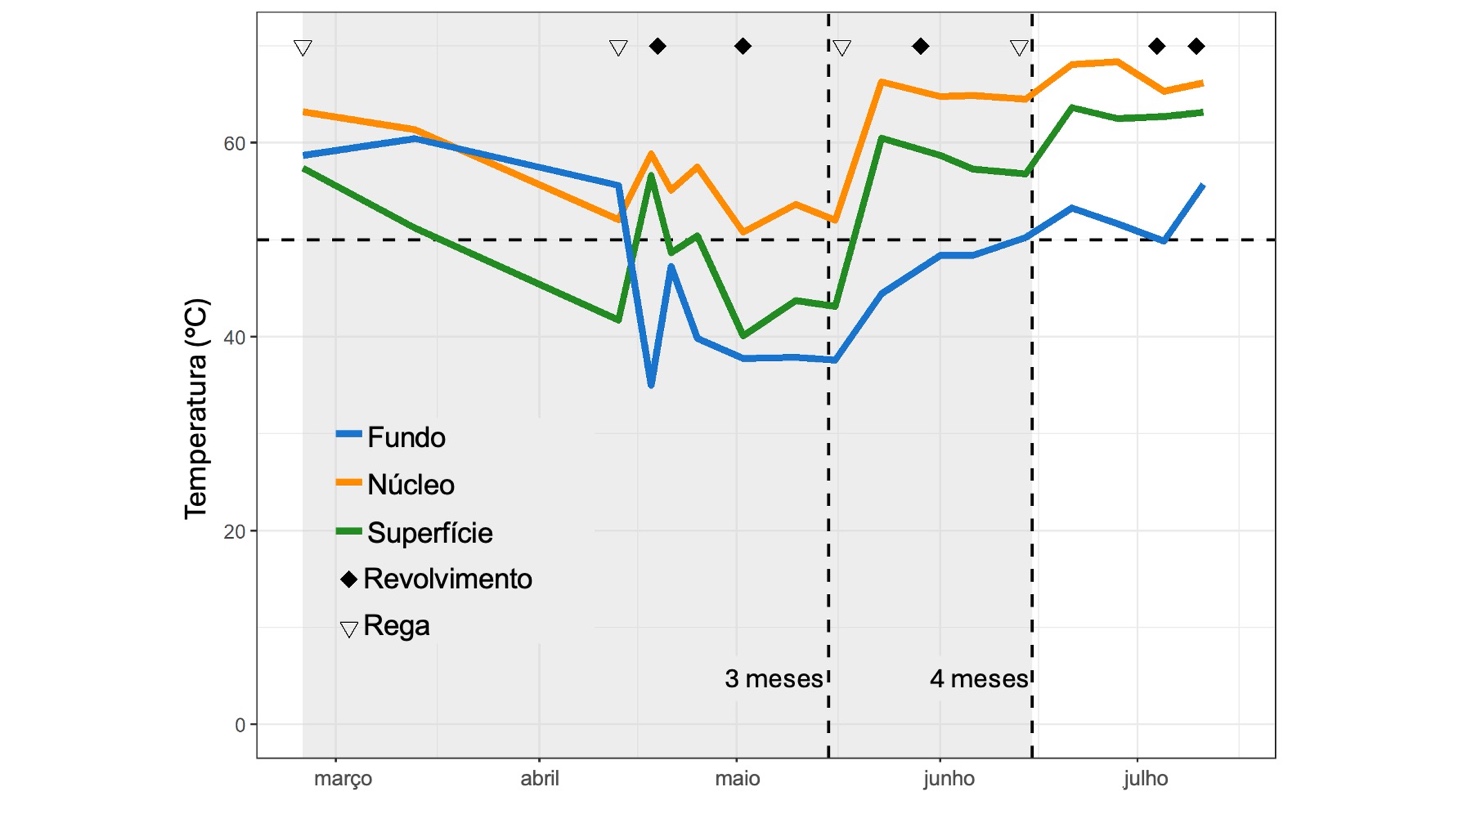
Na sequência deste resultado inicial em condições controladas, o efeito sobre a capacidade germinativa dos oósporos foi avaliado em condições reais, utilizando um composto de 50 m3 constituído principalmente por rebentos de videira e aparas de relva, revolvido e regado mensalmente. As folhas de videira contendo oósporos foram colhidas no outono de 2022, trituradas e homogeneizadas, depois distribuídas uniformemente por 30 sacos de tecido mata-borrão (malha de 11 µm, suficientemente fina para reter o material de ensaio) e colocadas na pilha de composto. Estes sacos foram enterrados em março de 2023 a diferentes profundidades para ter em conta a estratificação vertical da temperatura. Doze amostras foram aí mantidas durante 3 meses, de março a maio, e outras doze durante 4 meses, até junho (4 repetições por modalidade: duração x profundidade). As leituras térmicas foram efectuadas em vários pontos dos 3 níveis de composto cada 1 a 2 semanas (Figura 2). Seis sacos de pedaços de folhas do mesmo lote foram colocados em condições naturais no solo perto da pilha de composto, como controlo (4 repetições por duração). O composto atingiu uma média de 60°C no arranque e manteve-se acima dos 50°C durante dois meses. As temperaturas baixaram depois, oscilando entre 37°C e 54°C consoante a zona, até à recolha das primeiras amostras em meados de maio. No núcleo de compostagem, a temperatura nunca desceu abaixo dos 50°C. As temperaturas atingidas estão de acordo com as esperadas no composto para a sua higienização natural
A capacidade germinativa dos oósporos presentes nas amostras compostadas e de controlo foi avaliada utilizando o bioensaio descrito acima.
Não foi observada qualquer infeção nos discos armadilha em contacto com os oósporos colocados no composto (n = 960), independentemente da duração e da profundidade do enterramento (Figura 3). Em contrapartida, no caso dos sacos de inóculo de controlo, 11,5 ± 3,98 % (desvio-padrão) e 2,84 ± 1,48 % (desvio-padrão) dos discos armadilha em maio (n = 160) e junho (n = 160), respetivamente, foram infectados (sabe-se que a taxa de germinação dos oósporos diminui após um pico em abril). No entanto, a esporulação nos controlos foi inferior à do ano anterior devido a um inóculo inicial diferente, sendo a pressão do míldio inferior em 2022 do que em 2021.
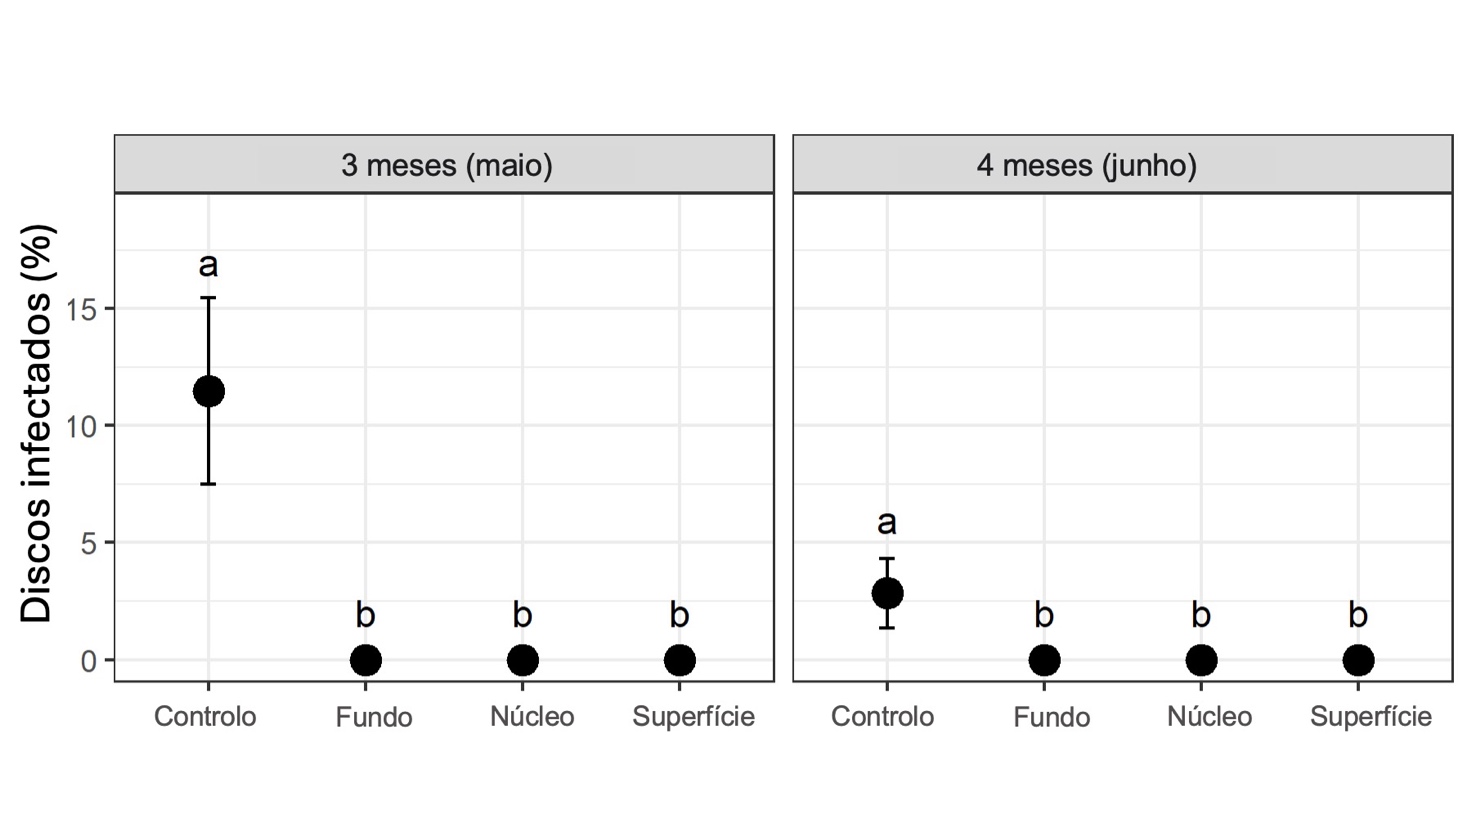
Os oósporos de P. viticola contidos nas folhas de videira parecem perder a sua capacidade germinativa depois de passarem 3 ou 4 meses em composto mantido a temperaturas entre 40 e 70°C.
Um método profilático promissor que precisa de ser reforçado e integrado numa estratégia preventiva global
Os nossos ensaios mostraram uma inibição da germinação dos oósporos de Plasmopara viticola após um período a temperaturas elevadas, tanto em condições controladas como em condições reais de compostagem. A compostagem de folhas de videira extraídas das parcelas no outono parece, portanto, eficaz para limitar o poder infecioso do inóculo primário do míldio nas videiras, e a matéria orgânica higienizada pode ser devolvida à vinha. Embora o estudo se concentre no parâmetro "temperatura", a composição, as propriedades intrínsecas e a gestão do composto são essenciais para o sucesso deste processo de combate às formas de armazenamento invernal do míldio
O sistema de compostagem das folhas da videira, baseado na redução do inóculo primário de P. viticola, poderia fazer parte de uma abordagem global da gestão preventiva das epidemias de míldio.
Está em curso o desenvolvimento de um método de desfoliação mecânica para remover a biomassa foliar contaminada de áreas significativas no outono, bem como trabalhos sobre os efeitos na fisiologia da vinha e na qualidade da colheita. Já foi desenvolvido um método para medir o inóculo de míldio no solo
Se esta prática de extração-compostagem reduzir efetivamente a pressão epidémica, poderá limitar a utilização de fungicidas de síntese e valorizar as estratégias de proteção baseadas em produtos de biocontrolo, ainda mais difíceis de controlar do que os fungicidas tradicionais, favorecendo simultaneamente a compostagem dos rebentos (em vez de os queimar) e contribuindo para a fertilização orgânica da vinha.
Agradecimentos: O projeto PROFIL é financiado pelo OFB no âmbito do convite à apresentação de propostas de I&I do plano Ecophyto 2+: "Abordagens globais para limitar a utilização de produtos fitofarmacêuticos: combinar medidas preventivas e curativas na cadeia de abastecimento, dos agricultores aos consumidores". Os autores agradecem aos membros da Câmara de Agricultura de Gironde, do IFV, da Unidade Experimental da Vinha e do Vinho de Bordéus (INRAE) e do Agrocampus Bordeaux Gironde (Escola de Viticultura de Libourne-Montagne) que participaram nas experiências.

Notas
- 1. Bollen, G. J., Volker, D., & Wijnen, A. P. (1989). Inactivation of soil-borne plant pathogens during small-scale composting of crop residues. Netherlands Journal of Plant Pathology, 95, 19-30. https://doi.org/10.1007/BF01974281
- 2. Hoitink, H. A., & Fahy, P. C. (1986). Basis for the control of soilborne plant pathogens with composts. Annual review of Phytopathology, 24(1), 93-114. https://doi.org/10.1146/annurev.py.24.090186.000521
- 3. Hill, G.K. (1998). Studies on the germination of Plasmopara viticola oospores with a floating disc test. Integrated Control in Viticulture. Vol. 21 (2) IOBC OILB.
- 4. Poeydebat C., Courchinoux E., Demeaux I., Rodriguez M., Chataigner A., Lelièvre, Goutouly J.-P., Rossi J.-P., Raynal M., Delière M., Delmotte F, 2024. Quantitative assessment and spatial distribution of Plasmopara viticola oospores in vineyard soil. bioRxiv, 10.1101/2024.07.29.605284.
- 5. Hoitink, H. A., & Fahy, P. C. (1986). Basis for the control of soilborne plant pathogens with composts. Annual review of Phytopathology, 24(1), 93-114. https://doi.org/10.1146/annurev.py.24.090186.000521
- 6. Bollen, G. J., Volker, D., & Wijnen, A. P. (1989). Inactivation of soil-borne plant pathogens during small-scale composting of crop residues. Netherlands Journal of Plant Pathology, 95, 19-30. https://doi.org/10.1007/BF01974281
- 7. Ylimäki, A., Toiviainen, A., Kallio, H., & Tikanmäki, E. (1983). Survival of some plant pathogens during industrial-scale composting of wastes from a food processing plant. Annales Agriculturae Fenniae, 1983, Vol. 22, No. 2, 77-85 ref. 11
- 8. Larbi, M. (2006). Influence de la qualité des composts et de leurs extraits sur la protection des plantes contre les maladies fongiques (Doctoral dissertation, Institut de recherche de l'agriculture biologique FiBL, CH-Frick; l'Université de Neuchâtel). Disponible sur : https://orgprints.org/id/file/54614
- 9. Mehta, C. M., Palni, U., Franke-Whittle, I. H., & Sharma, A. K. (2014). Compost: its role, mechanism and impact on reducing soil-borne plant diseases. Waste management, 34(3), 607-622. https://doi.org/10.1016/j.wasman.2013.11.012
- 10. Poeydebat C., Courchinoux E., Demeaux I., Rodriguez M., Chataigner A., Lelièvre, Goutouly J.-P., Rossi J.-P., Raynal M., Delière M., Delmotte F, 2024. Quantitative assessment and spatial distribution of Plasmopara viticola oospores in vineyard soil. bioRxiv, 10.1101/2024.07.29.605284.
Referências
- Bollen, G. J., Volker, D., & Wijnen, A. P. (1989). Inactivation of soil-borne plant pathogens during small-scale composting of crop residues. Netherlands Journal of Plant Pathology, 95, 19-30. https://doi.org/10.1007/BF01974281
- Hoitink, H. A., & Fahy, P. C. (1986). Basis for the control of soilborne plant pathogens with composts. Annual review of Phytopathology, 24(1), 93-114. https://doi.org/10.1146/annurev.py.24.090186.000521
- Hill, G.K. (1998). Studies on the germination of Plasmopara viticola oospores with a floating disc test. Integrated Control in Viticulture. Vol. 21 (2) IOBC OILB.
- Poeydebat C., Courchinoux E., Demeaux I., Rodriguez M., Chataigner A., Lelièvre, Goutouly J.-P., Rossi J.-P., Raynal M., Delière M., Delmotte F, 2024. Quantitative assessment and spatial distribution of Plasmopara viticola oospores in vineyard soil. bioRxiv, https://doi.org/10.1101/2024.07.29.605284
- Ylimäki, A., Toiviainen, A., Kallio, H., & Tikanmäki, E. (1983). Survival of some plant pathogens during industrial-scale composting of wastes from a food processing plant. Annales Agriculturae Fenniae, 1983, Vol. 22, No. 2, 77-85 ref. 11
- Larbi, M. (2006). Influence de la qualité des composts et de leurs extraits sur la protection des plantes contre les maladies fongiques (Doctoral dissertation, Institut de recherche de l’agriculture biologique FiBL, CH-Frick; l’Université de Neuchâtel). https://orgprints.org/id/file/54614
- Mehta, C. M., Palni, U., Franke-Whittle, I. H., & Sharma, A. K. (2014). Compost: its role, mechanism and impact on reducing soil-borne plant diseases. Waste management, 34(3), 607-622. https://doi.org/10.1016/j.wasman.2013.11.012
Estatísticas do item
 Acessos: 4595
Downloads
 XML: 80