
Biofilm di Brettanomyces bruxellensis: uno stile di vita per resistere agli stress ambientali? Fonte: articolo scientifico “New advances on the Brettanomyces bruxellensis biofilm mode of life” (International Journal of Food Microbiology, 2020). Lingua originale dell'articolo: inglese.

La capacità di formare biofilm è una potenziale strategia di resistenza, sebbene finora non sia stata molto esplorata per il lievito alterante Brettanomyces bruxellensis. È stata studiata la capacità di due ceppi di aderire e formare biofilm su pezzi di acciaio inossidabile all’interno del vino. Utilizzando la microscopia elettronica, sono state identificate particolari strutture cellulari potenzialmente coinvolte nella resistenza di B. bruxellensis, come cellule filamentose o strutture simili alle clamidospore. Inoltre, sono state osservate cellule libere, rilasciate dai biofilm, le quali si è ipotizzato siano fonte di alterazione ricorrente nel vino.
Il biofilm può essere definito come una comunità di microrganismi che sono adesi in modo irreversibile a una superficie, legati insieme e incorporati in una matrice autoprodotta. Questa strategia di crescita, diffusa tra i microrganismi, contribuisce alla loro persistenza in diversi ambienti attraverso una maggiore resistenza allo stress e una migliore colonizzazione delle superfici
Formazione e struttura del biofilm nel vino
Le cellule di due ceppi selezionati (denominati "11" e "14" e precedentemente isolati da apparecchiature per la vinificazione) sono state adattate alle condizioni del vino rosso (concentrazione di alcol e pH) come descritto da Longin et al., 2016
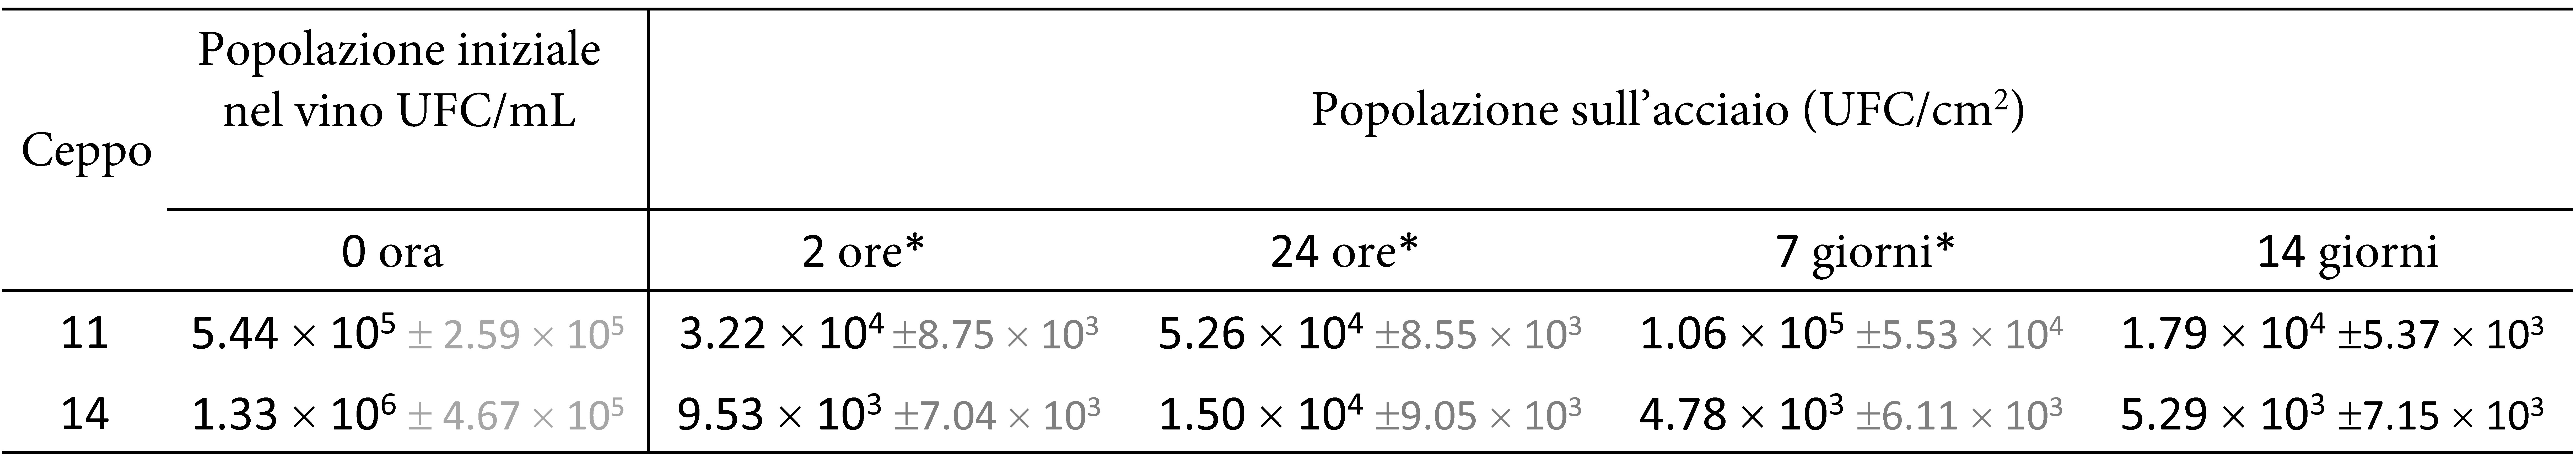
La capacità di adesione ai pezzi di acciaio e la formazione di biofilm di entrambi i ceppi nel vino sono state monitorate dopo 2 ore, 24 ore, 7 giorni e 14 giorni di incubazione utilizzando il protocollo descritto in precedenza. Le colture di lievito sono state inizialmente inoculate a circa 106 UFC/mL (Tabella 1). Il ceppo 14 aveva un debole tasso di adesione dello 0,69% dopo 2 ore nel vino rispetto al ceppo 11 (5,69%). Questa differenza nella popolazione è stata mantenuta per tutto il periodo di 7 giorni, ma non dopo 14 giorni di incubazione, anche se non è stata osservata alcuna crescita ulteriore del biofilm per nessuno dei due ceppi nel vino (Tabella 1). Ciò suggerisce che B. bruxellensis è in grado di aderire e formare biofilm in ambienti difficili come il vino, ma la crescita del biofilm è scarsa dopo 14 giorni di incubazione.
In parallelo, le osservazioni dei ceppi 11 e 14 dopo 7 giorni di incubazione sui pezzi di acciaio inossidabile hanno rivelato la presenza di microcolonie contenenti cellule incorporate in sostanze polimeriche extracellulari (SPE) (Figura 1A). Inoltre, è importante notare che sono state osservate numerose cellule filamentose all'interno delle microcolonie, le quali si ipotizza giochino un ruolo strutturale all'interno del biofilm (Figura 1A). Le osservazioni microscopiche hanno anche rivelato la presenza di strutture più grandi di una normale cellula di lievito, con pareti spesse e derivate da cellule filamentose (Figura 1B). Tali caratteristiche sono tipiche di strutture simili a clamidospore, come precedentemente riportato per C. albicans
Figura 1. A) Osservazioni SEM di microcolonie di 7 giorni dei ceppi 11 e 14 sviluppate nel vino rosso su pezzi di acciaio inossidabile. Gli ingrandimenti sono stati eseguiti a 500 x (sviluppo delle microcolonie sulla superficie dell'acciaio inossidabile) e a 7000 x (cellule filamentose e SPE indicati rispettivamente dalle frecce bianche n ° 1 e n ° 2). B) Osservazioni SEM di microcolonie di 14 giorni del ceppo 14 sviluppate nel vino rosso su pezzi di acciaio inossidabile. Gli ingrandimenti sono stati eseguiti a 7000 x (struttura simile a clamidospora indicata dalla freccia bianca).
Tabella 1. Crescita di microcolonie su pezzi di acciaio inossidabile nel vino per i ceppi 11 e 14 a 2 e 24 ore e 7 e 14 giorni. I valori rappresentano la media di tre repliche biologiche indipendenti, riportata con la deviazione standard (valori grigi). Il segno * indica una differenza significativa (ANOVA, p-value ≤ 0,05) tra i 2 ceppi allo stesso punto temporale.
Impatto del vino sul biofilm di B. bruxellensis
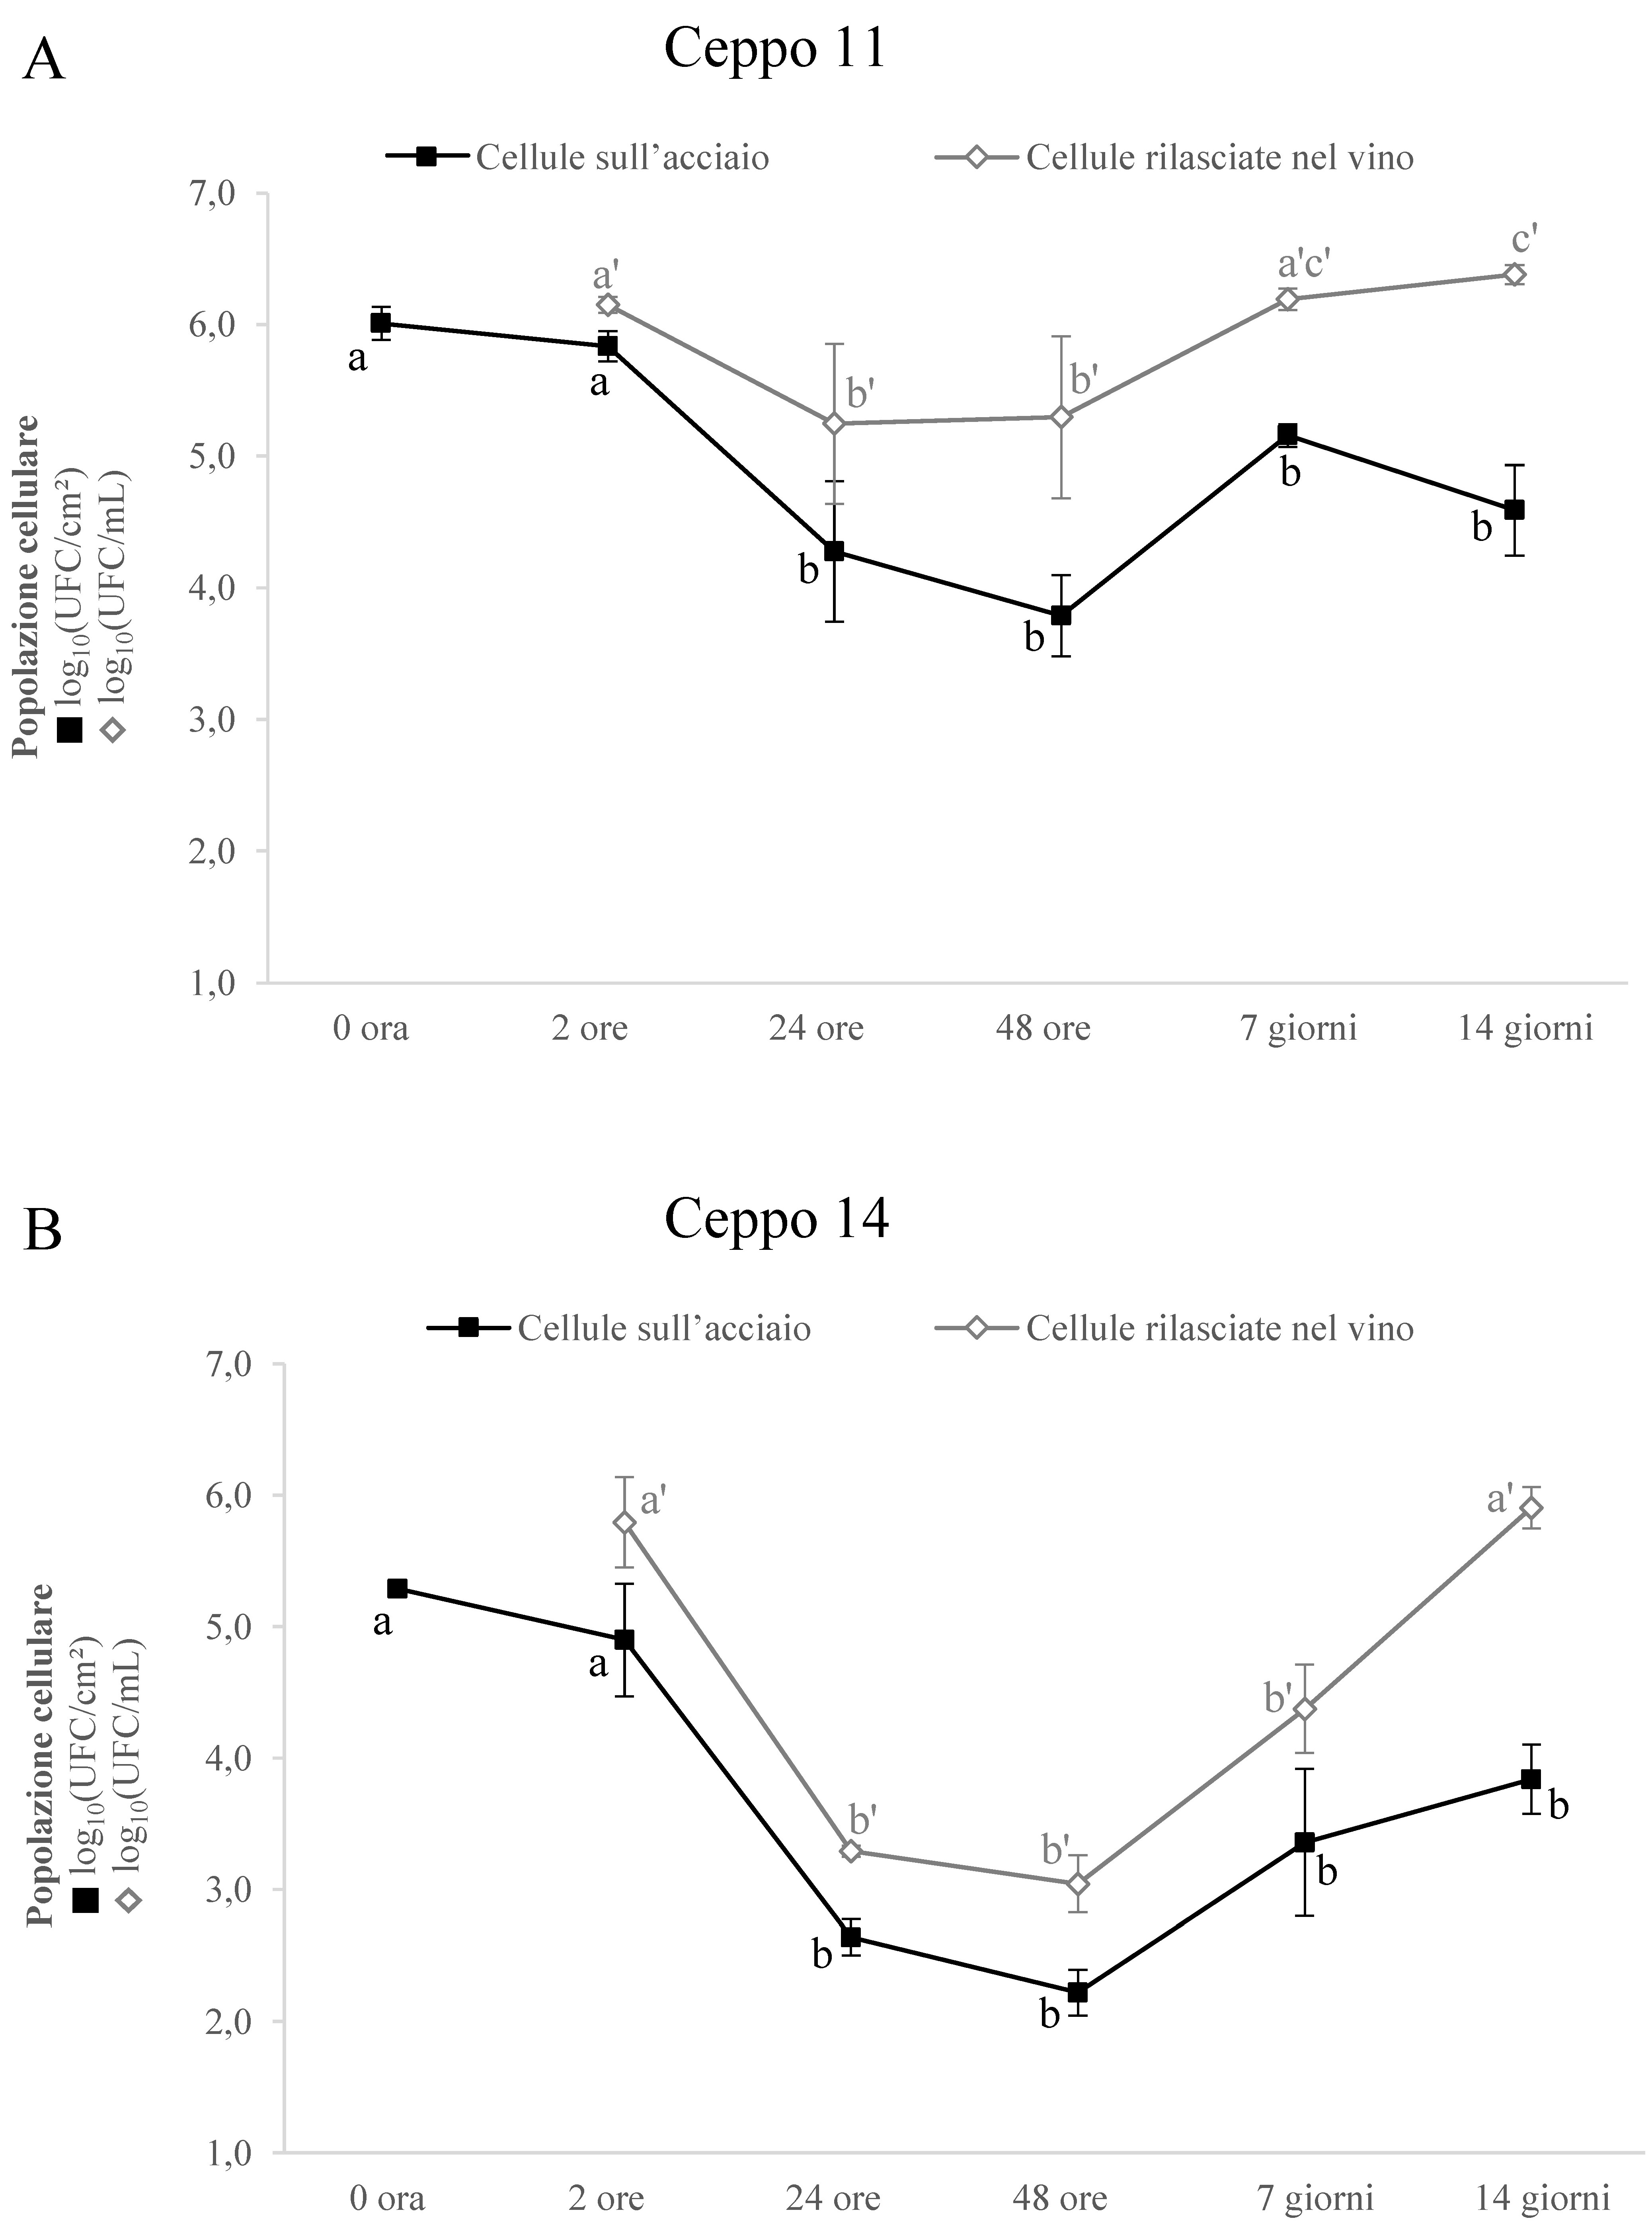
In primo luogo, abbiamo prodotto biofilm su pezzi di acciaio inossidabile in terreno YPD (come descritto in precedenza) e, dopo 7 giorni di incubazione, i pezzi di acciaio con cellule adese nel biofilm sono stati trasferiti nel vino per studiarne l'impatto su biofilm di B. bruxellensis vecchio di 7 giorni. Sono stati enumerati due tipi di cellule: (i) quelle che sono rimaste all'interno del biofilm sui pezzi di acciaio e (ii) quelle che sono state rilasciate nel vino (Figura 2). Per entrambi i ceppi, la quantità di cellule all'interno del biofilm è diminuita significativamente dopo 24 ore, ma è rimasta stabile da allora fino a 14 giorni (Figure 2A e 2B). Come descritto in precedenza, il ceppo 14 è stato influenzato più negativamente dal vino rispetto al ceppo 11. Inoltre, è stato osservato un importante fenomeno di rilascio cellulare dal biofilm già 2 ore dopo l'inoculo nel vino (a circa 106 UFC/mL) per entrambi i ceppi (Figure 2A e 2B). Successivamente, per il ceppo 14, è stata osservata una diminuzione del numero di cellule rilasciate durante le 24 ore, prima di rimanere stabile fino a 7 giorni. Ciò è stato seguito da un aumento del numero di cellule tra il giorno 7 e il giorno 14. Lo stesso comportamento è stato osservato per il ceppo 11, ma in misura minore.
Figura 2. Comportamento della microcolonia nel vino per il ceppo 11 (A) e per il ceppo 14 (B). La popolazione cellulare sul pezzo di acciaio è espressa in log10 (UFC/cm²) e la popolazione cellulare rilasciata nel vino in log10 (UFC/mL). Le barre di errore rappresentano la deviazione standard tra tre repliche indipendenti. Lettere diverse indicano una differenza significativa (ANOVA, p-value ≤ 0,05).
Conclusione
In questo studio, è stata dimostrata la capacità del lievito alterante B. bruxellensis di formare biofilm sull'acciaio inossidabile in contatto con il vino. Come descritto per altri microrganismi
NOTES
- Davey, M.E., & O'toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., & Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res Int, vol. 89, p. 620-630.
- Bastard, A., Coelho, C., Briandet, R., Canette, A., Gougeon, R., Alexandre, H., Guzzo, J., & Weidmann, S. (2016). Effect of biofilm formation by Oenococcus oeni on malolactic fermentation and the release of aromatic compounds in wine. Front Microbiol, vol. 7, p. 613.
- Martin, S.W., Douglas, L.M., & Konopka, J.B. (2005). Cell cycle dynamics and quorum sensing in Candida albicans chlamydospores are distinct from budding and hyphal growth. Eukaryot Cell, vol. 4, p. 1191-202.
- Davey, M.E., & O'toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Ojeda-Robertos NF, Torres-Acosta JF, Ayala-Burgos AJ, Sandoval-Castro CA, Valero-Coss RO, Mendoza-de-Gives P. 2009. Digestibility of Duddingtonia flagrans chlamydospores in ruminants: in vitro and in vivo studies. BMC Vet Res 5:46.
Riferimenti bibliografici
- Lebleux, M., Abdo, H., Coelho, C., Basmaciyan, L., Albertin, W., Maupeu, J., Laurent, J., Roullier-Gall., Alexandre, H. Guilloux-Benatier, M., Weidmann, & S. Rousseaux, S. (2020). “New Advances on the Brettanomyces bruxellensis Biofilm Mode of Life.” International Journal of Food Microbiology, vol. 318, p. 108464., doi:10.1016/j.ijfoodmicro.2019.108464.
- Davey, M.E., & O’toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., & Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res Int, vol. 89, p. 620-630.
- Bastard, A., Coelho, C., Briandet, R., Canette, A., Gougeon, R., Alexandre, H., Guzzo, J., & Weidmann, S. (2016). Effect of biofilm formation by Oenococcus oeni on malolactic fermentation and the release of aromatic compounds in wine. Front Microbiol, vol. 7, p. 613.
- Martin, S.W., Douglas, L.M., & Konopka, J.B. (2005). Cell cycle dynamics and quorum sensing in Candida albicans chlamydospores are distinct from budding and hyphal growth. Eukaryot Cell, vol. 4, p. 1191-202.
- Davey, M.E., & O’toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Ojeda-Robertos NF, Torres-Acosta JF, Ayala-Burgos AJ, Sandoval-Castro CA, Valero-Coss RO, Mendoza-de-Gives P. 2009. Digestibility of Duddingtonia flagrans chlamydospores in ruminants: in vitro and in vivo studies. BMC Vet Res 5:46.
Statistiche articolo
 Viste: 3213
Downloads
 PDF: 201