
Biofilmes de Brettanomyces bruxellensis: um estilo de vida para suportar os stresses ambientais? Extraído do artigo de investigação “New advances on the Brettanomyces bruxellensis biofilm mode of life” (International Journal of Food Microbiology, 2020). Língua original do artigo: inglês.

A capacidade de formar biofilmes é uma potencial estratégia de resistência, embora, até ao presente, não tenha sido muito explorada no caso da levedura deteriorante do vinho, a Brettanomyces bruxellensis. Estudou-se a capacidade de aderência e de formação de biofilmes em aparas de aço inoxidável, no contexto da produção de vinho, de duas estirpes. Recorrendo à microscopia eletrónica, foram identificadas estruturas celulares específicas, tais como células filamentosas ou estruturas semelhantes a clamidósporos, potencialmente envolvidas no mecanismo de resistência da B. bruxellensis. Além disso, foram observadas células livres, libertadas pelos biofilmes, tendo-se postulado a hipótese de serem responsáveis pela deterioração recorrente do vinho.
O biofilme pode definir-se como uma comunidade de micro-organismos irreversivelmente unidos a uma superfície e entre si, incorporados numa matriz autoproduzida. Esta estratégia de crescimento, amplamente disseminada entre os micro-organismos, contribui para a sua persistência em vários ambientes, através de uma maior resistência ao stress e da colonização de superfícies
Formação e estrutura dos biofilmes no vinho
As células das duas estirpes selecionadas (designadas por “11” e “14” e previamente isoladas a partir de equipamentos vinícolas) foram adaptadas às condições presentes no vinho tinto (teor alcoólico e pH), conforme descritas por Longin et al., 2016
A aderência e formação de biofilmes no vinho por ambas as estirpes foram monitorizadas na apara após 2h, 24h e 7 e 14 dias de incubação, recorrendo ao protocolo anteriormente descrito. As culturas de levedura foram, inicialmente, inoculadas com cerca de 106 UFC/ml (Tabela 1). Após 2 horas no vinho, a estirpe 14 apresentou uma fraca taxa de aderência, de 0,69 %, em comparação com a estirpe 11 (5,69 %). Esta diferença populacional manteve-se ao longo de 7 dias, mas não após 14 dias de incubação, ainda que não se tenha observado qualquer crescimento adicional do biofilme de nenhuma das estirpes inoculadas no vinho (Tabela 1). Este facto indicia a capacidade de aderência e formação de biofilmes em ambientes adversos, como o vinho, da B. bruxellensis, apesar de o crescimento do biofilme ser diminuto após 14 dias de incubação.
Paralelamente, as observações das estirpes 11 e 14, após 7 dias de incubação em aparas de aço inoxidável, revelaram a presença de microcolónias com células incorporadas em substâncias poliméricas extracelulares (SPE) (Figura 1A). Importa, além disso, ter em conta que foi observado um grande número de células filamentosas no interior das microcolónias, postulando-se a hipótese de as mesmas desempenharem um papel estrutural no biofilme (Figura 1A). As observações microscópicas demonstraram, igualmente, a presença de estruturas de maior dimensão do que uma célula normal de levedura, com paredes espessas e derivadas de células filamentosas (Figura 1B). Estas propriedades são características de estruturas semelhantes a clamidósporos, conforme anteriormente relatado no caso da C. albicans
Figura 1. A) Observações por MEV de microcolónias das estirpes 11 e 14 com 7 dias de idade, desenvolvidas em vinho tinto, em aparas de aço inoxidável. Foram efetuadas ampliações de 500x (desenvolvimento das microcolónias na superfície de aço inoxidável) e de 7000x (células filamentosas e SPE, respetivamente indicadas pelas setas brancas n.º 1 e 2). B) Observações por MEV de microcolónias da estirpe 14 com 14 dias de idade, desenvolvidas em vinho tinto, em aparas de aço inoxidável. Foram efetuadas ampliações de 7000x (estrutura semelhante a um clamidósporo, indicada por uma seta branca).
Tabela 1. Crescimento de microcolónias das estirpes 11 e 14 em aparas de aço inoxidável, após 2 e 24 horas e 7 e 14 dias. Os valores representam a média de três réplicas biológicas independentes, atribuída com desvio-padrão (valores a cinzento). O asterisco* indica uma diferença significativa (ANOVA, valor de P ≤ 0,05) entre as 2 estirpes num dado momento.
Estirpe |
População inicial no vinho em UFC/ml |
População na apara (UFC/cm2) |
|||
|---|---|---|---|---|---|
0 hora |
2 horas* |
24 horas* |
7 dias* |
14 dias |
|
11 |
5,44 x 105 ± 2,59 x 105 |
3,22 x 104 ±8,75 x 103 |
5,26 x 104 ±8,55 x 103 |
1,06 x 105 ±5,53 x 104 |
1,79 x 104 ±5,37 x 103 |
14 |
1,33 x 106 ±4,67 x 105 |
9,53 x 103 ±7,04 x 103 |
1,50 x 104 ±9,05 x 103 |
4,78 x 103 ±6,11 x 103 |
5,29 x 103 ±7,15 x 103 |
Impacto do vinho sobre o biofilme da B. bruxellensis
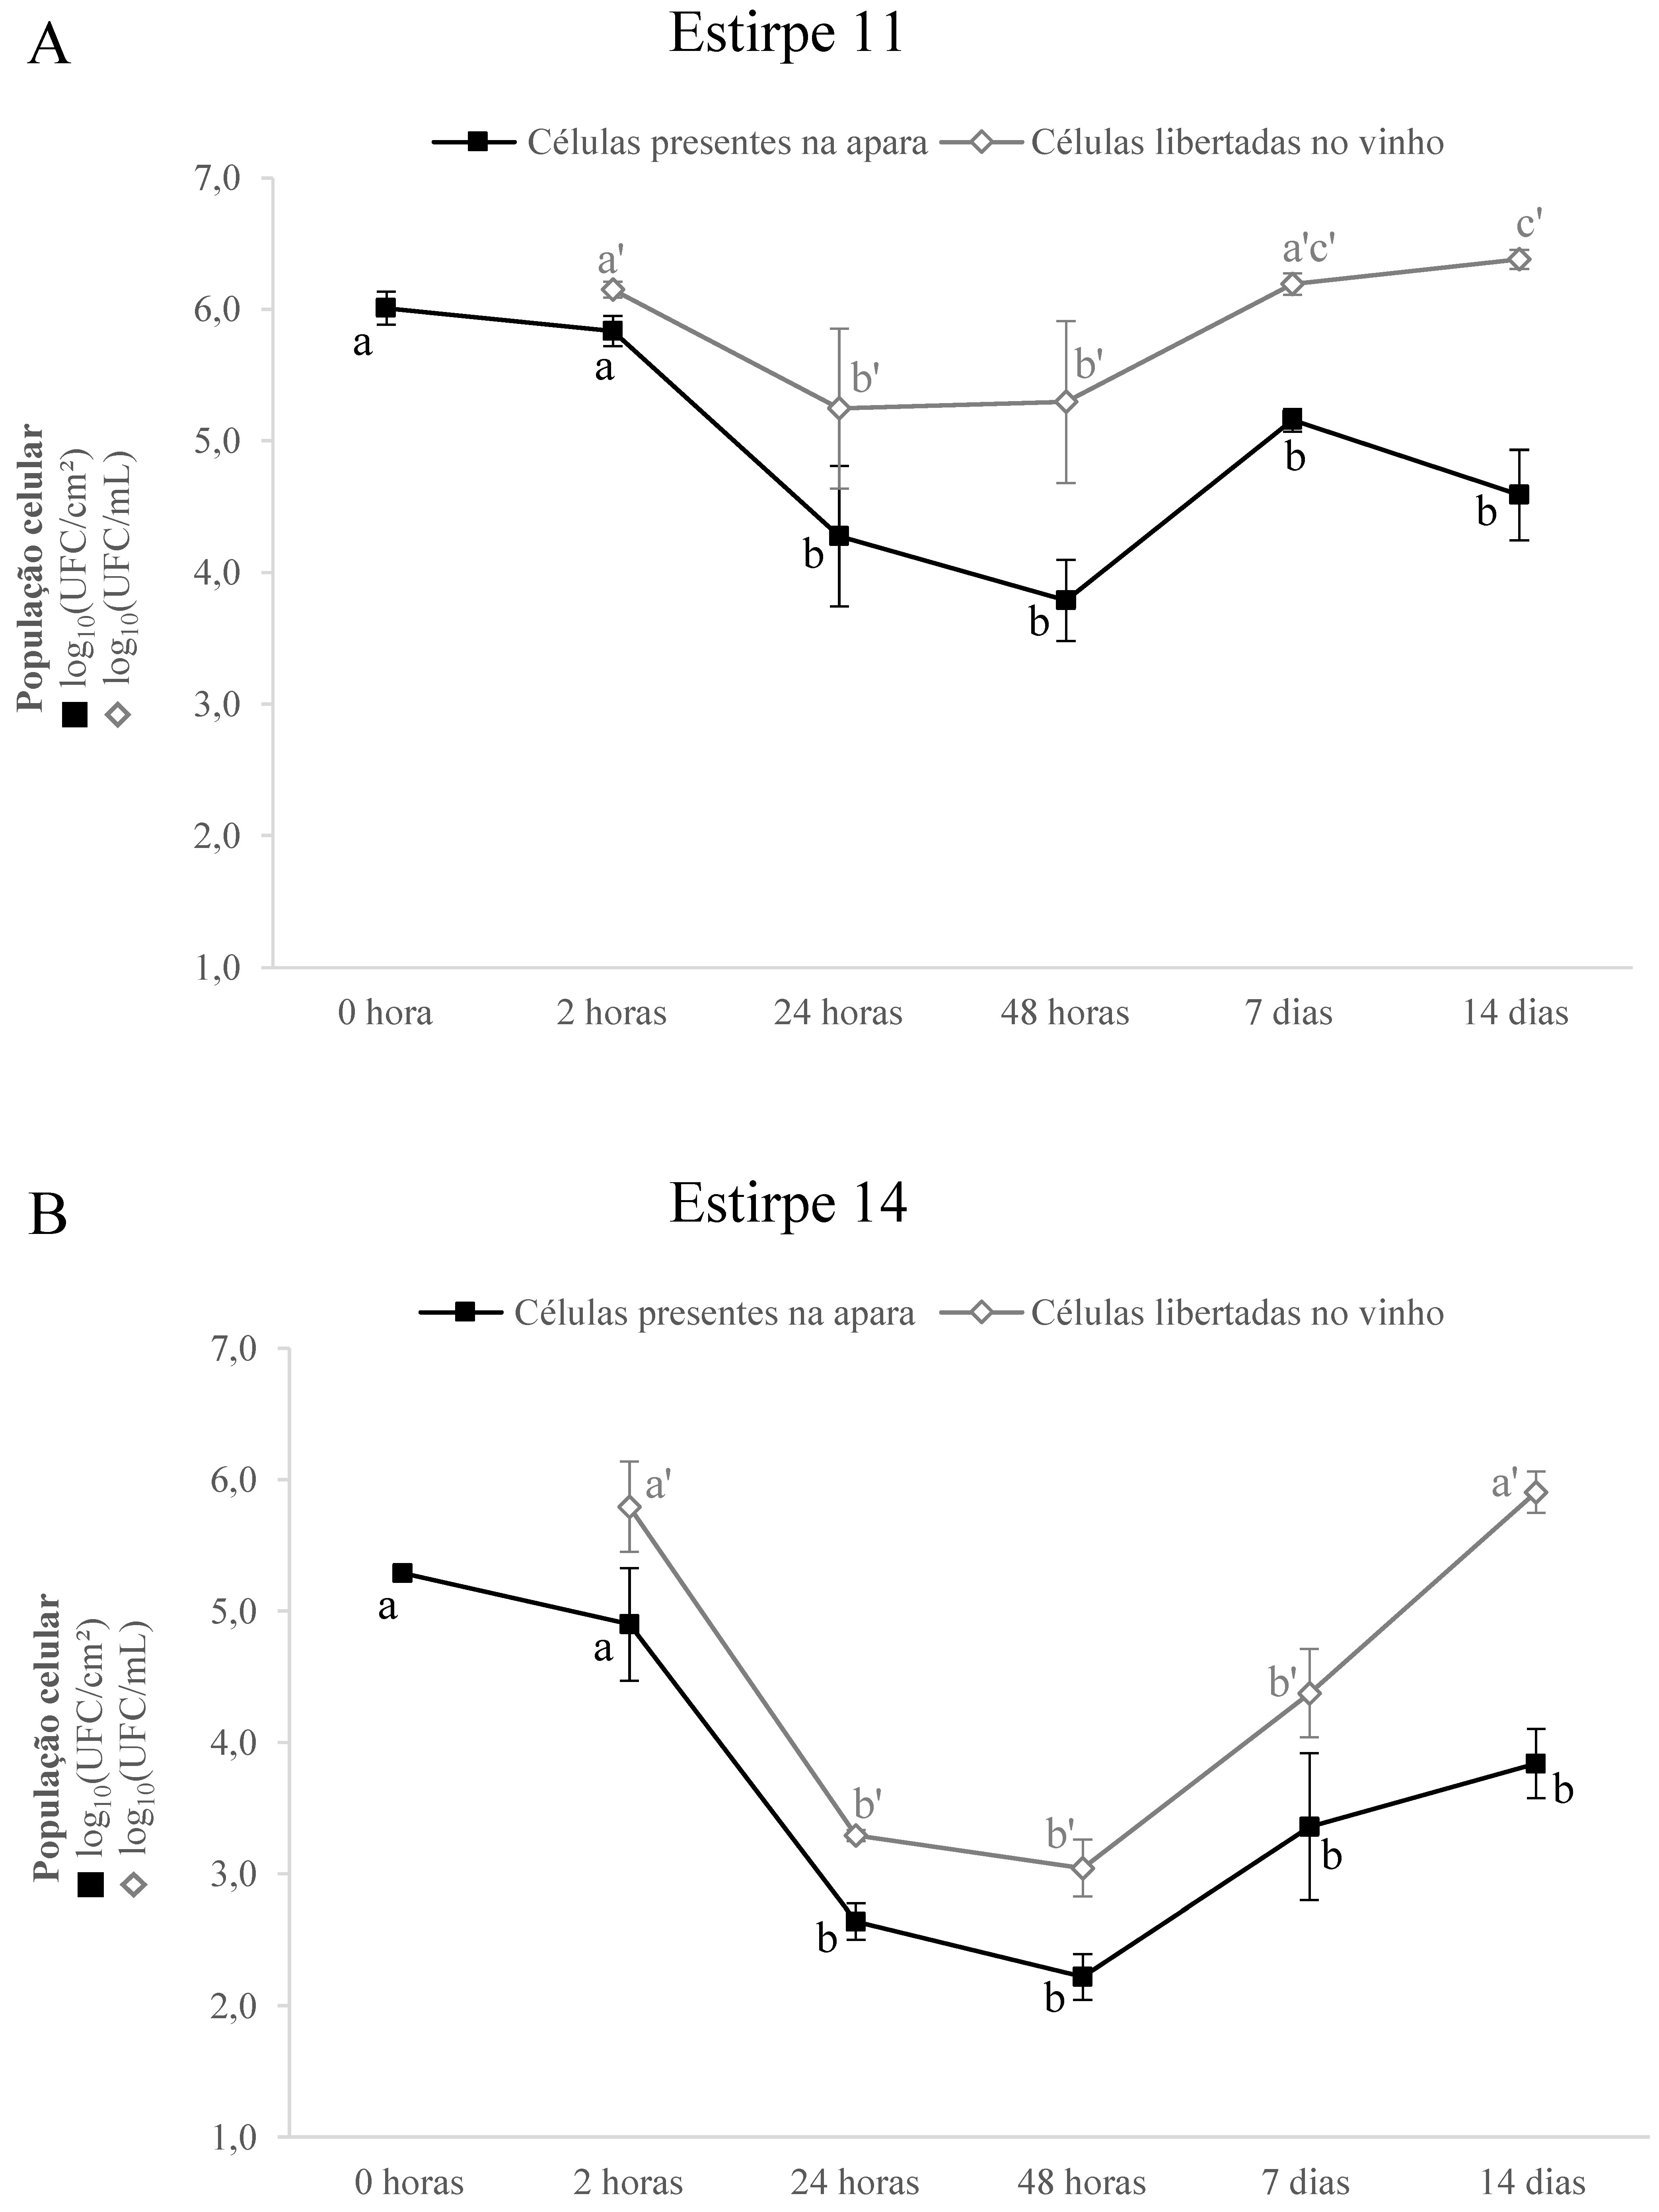
Em primeiro lugar, foram produzidos biofilmes em aparas de aço inoxidável, num meio YPD (conforme anteriormente descrito) e, após 7 dias de incubação, as aparas com células aderentes a biofilmes foram transferidas para o vinho, de modo a estudar o respetivo impacto sobre os biofilmes de B. bruxellensis com 7 dias de idade. Foram enumerados dois tipos de células: (i) as que restavam no interior do biofilme das aparas e (ii) as que foram libertadas no vinho (Figura 2). No caso de ambas as estirpes, a quantidade de células no interior dos biofilmes diminuiu expressivamente após 24h, mas, posteriormente, permaneceu estável, até 14 dias (Figuras 2A e 2B). Conforme anteriormente descrito, o vinho teve um impacto mais negativo sobre a estirpe 14 do que sobre a estirpe 11. Acresce a observação de um fenómeno significativo de libertação de células pelo biofilme, decorridas apenas 2h da inoculação no vinho (com cerca de 106 UFC/ml), no caso de ambas as estirpes (Figuras 2A e 2B). Posteriormente, no caso da estirpe 14, registou-se um decréscimo do número de células libertadas durante 24 horas, antes de estabilizar durante, no máximo, 7 dias. A esta diminuição seguiu-se um aumento das contagens de células entre os dias 7 e 14. Observou-se o mesmo comportamento no caso da estirpe 11, embora em menor grau.
Figura 2. Comportamento das microcolónias no vinho, no caso (A) da estirpe 11 e (B) da estirpe 14. A população celular na apara é expressa em log10 (UFC/cm²) e a população celular libertada no vinho, em log10 (UFC/ml). As barras de erro representam o desvio-padrão entre três réplicas independentes. As diferentes letras indicam uma diferença significativa (ANOVA, valor de P ≤ 0,05).
Conclusão
Neste estudo, demonstrou-se, no vinho, a capacidade da levedura deteriorante B. bruxellensis de formar um biofilme em aço inoxidável. Conforme descrito em relação a outros micro-organismos
NOTES
- Davey, M.E., & O'toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., & Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res Int, vol. 89, p. 620-630.
- Bastard, A., Coelho, C., Briandet, R., Canette, A., Gougeon, R., Alexandre, H., Guzzo, J., & Weidmann, S. (2016). Effect of biofilm formation by Oenococcus oeni on malolactic fermentation and the release of aromatic compounds in wine. Front Microbiol, vol. 7, p. 613.
- Martin, S.W., Douglas, L.M., & Konopka, J.B. (2005). Cell cycle dynamics and quorum sensing in Candida albicans chlamydospores are distinct from budding and hyphal growth. Eukaryot Cell, vol. 4, p. 1191-202.
- Davey, M.E., & O'toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Ojeda-Robertos NF, Torres-Acosta JF, Ayala-Burgos AJ, Sandoval-Castro CA, Valero-Coss RO, Mendoza-de-Gives P. 2009. Digestibility of Duddingtonia flagrans chlamydospores in ruminants: in vitro and in vivo studies. BMC Vet Res 5:46.
Referências
- Lebleux, M., Abdo, H., Coelho, C., Basmaciyan, L., Albertin, W., Maupeu, J., Laurent, J., Roullier-Gall., Alexandre, H. Guilloux-Benatier, M., Weidmann, & S. Rousseaux, S. (2020). “New Advances on the Brettanomyces bruxellensis Biofilm Mode of Life.” International Journal of Food Microbiology, vol. 318, p. 108464., doi:10.1016/j.ijfoodmicro.2019.108464.
- Davey, M.E., & O’toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., & Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res Int, vol. 89, p. 620-630.
- Bastard, A., Coelho, C., Briandet, R., Canette, A., Gougeon, R., Alexandre, H., Guzzo, J., & Weidmann, S. (2016). Effect of biofilm formation by Oenococcus oeni on malolactic fermentation and the release of aromatic compounds in wine. Front Microbiol, vol. 7, p. 613.
- Martin, S.W., Douglas, L.M., & Konopka, J.B. (2005). Cell cycle dynamics and quorum sensing in Candida albicans chlamydospores are distinct from budding and hyphal growth. Eukaryot Cell, vol. 4, p. 1191-202.
- Davey, M.E., & O’toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Ojeda-Robertos NF, Torres-Acosta JF, Ayala-Burgos AJ, Sandoval-Castro CA, Valero-Coss RO, Mendoza-de-Gives P. 2009. Digestibility of Duddingtonia flagrans chlamydospores in ruminants: in vitro and in vivo studies. BMC Vet Res 5:46.
Estatísticas do item
 Acessos: 3213
Downloads
 PDF: 173