
Biofilms de Brettanomyces bruxellensis: ¿una forma de vida para aguantar presiones ambientales? Información extraída del artículo de investigación “New advances on the Brettanomyces bruxellensis biofilm mode of life” (International Journal of Food Microbiology, 2020). Idioma original del artículo: inglés.

La habilidad para formar biofilms es una estrategia de resistencia potencial, a pesar de que hasta ahora no se ha explorado mucho en la levadura contaminante del vino, Brettanomyces bruxellensis. Se estudió la capacidad de dos cepas para adherirse y formar biofilms en chips de acero inoxidable en el vino. Usando microscopía electrónica, se identificaron estructuras celulares particulares, tales como células filamentosas o estructuras tipo clamidosporas, potencialmente involucradas en la resistencia de B. bruxellensis. Además, se observaron células libres liberadas desde los biofilms, y se plantea la hipótesis de que esta sea una causa recurrente de contaminación en el vino.
Un biofilm puede ser definido como una comunidad de microorganismos que están irreversiblemente adheridos a una superficie, relacionados, e insertos en una matriz autoproducida. Esta estrategia de crecimiento, que es ampliamente difundida entre los microorganismos, contribuye a su persistencia en varios ambientes a través de la resistencia al estrés y la colonización de superficies
Formación y estructura de biofilms en el vino
Las células de dos cepas seleccionadas (llamadas “11” y “14”, previamente aisladas de equipamientos de vinificación) fueron adaptadas a condiciones de vino tinto (concentración de alcohol y pH) como descrito por Longin et al., 2016
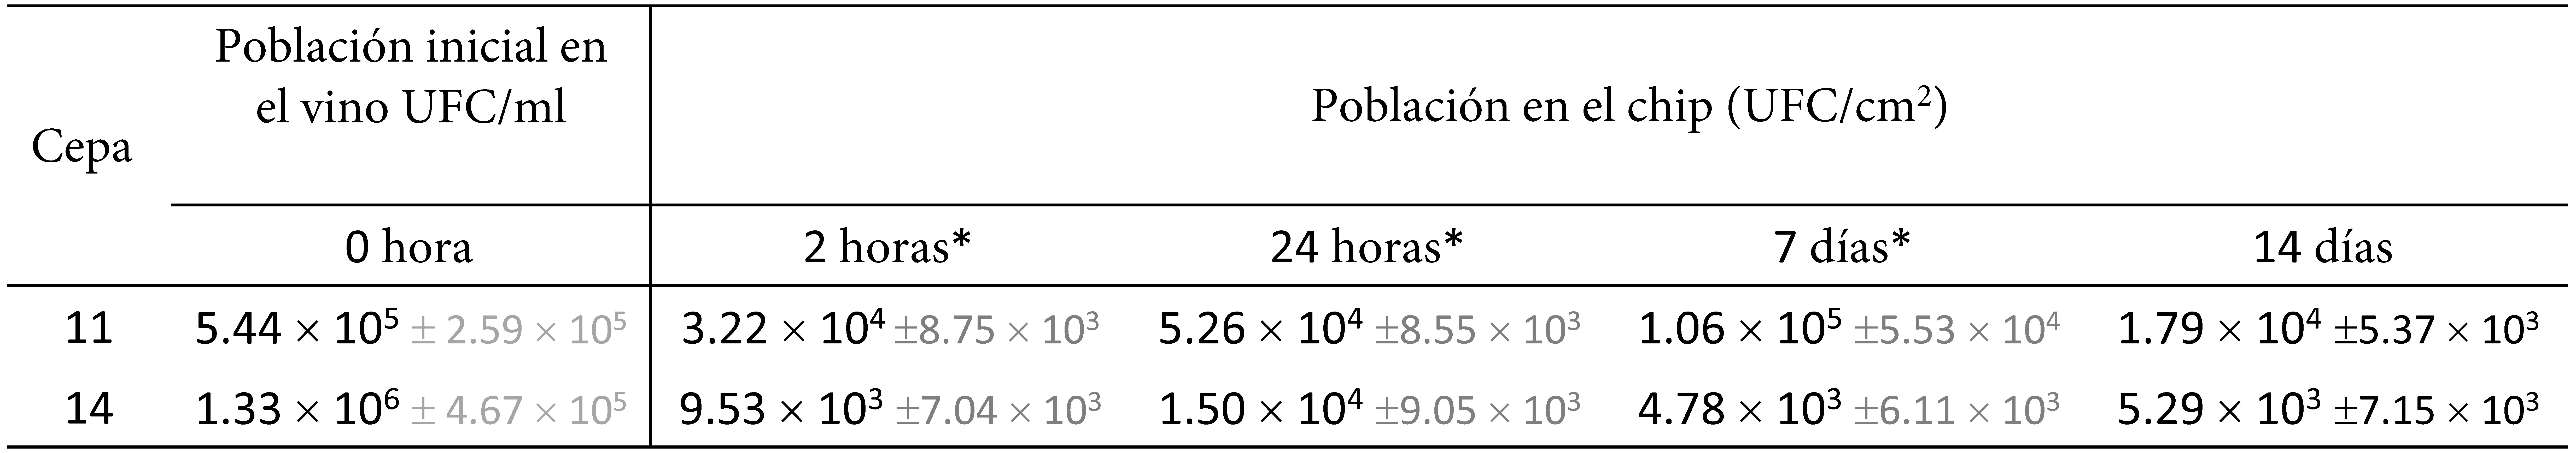
La adhesión y formación de biofilms de ambas cepas en el vino fue monitoreada en los chips después de 2 h, 24 h y 7 y 14 días de incubación usando el protocolo descrito previamente. Los cultivos de levaduras fueron inicialmente inoculados a alrededor de 106 UFC/mL (Tabla 1). La cepa 14 tuvo una tasa de adhesión débil de 0,69 % luego de 2 h en el vino comparada a la cepa 11 (5,69 %). Esta diferencia en la población se mantuvo a lo largo de 7 días, pero no al cabo de 14 días de incubación, pese a que luego no se observó crecimiento adicional de biofilm para ninguna de las cepas en el vino (Tabla 1). Esto sugiere que B. bruxellensis es capaz de adherirse y formar biofilms en ambientes hostiles como el vino, pero el crecimiento del biofilm es pobre luego de 14 días de incubación.
En paralelo, observaciones en las cepas 11 y 14 después de 7 días de incubación en chips de acero inoxidable revelaron la presencia de microcolonias que contenían células incrustadas en sustancias poliméricas extracelulares (SPE) (Figura 1A). Además, es importante notar que se observaron numerosas células filamentosas dentro de las microcolonias, las cuales hipotéticamente juegan un rol estructural dentro del biofilm (Figura 1A). Observaciones microscópicas también revelaron la presencia de estructuras más grandes que una célula de levadura usual, con paredes gruesas y derivadas de células filamentosas (Figura 1B). Tales rasgos son característicos de estructuras tipo clamidosporas, como se ha reportado previamente en C. albicans
Figura 1. A) Observaciones por MEB de microcolonias de 7 días de cepas 11 y 14 desarrolladas en vino tinto en chips de acero inoxidable. Las magnificaciones fueron efectuadas a 500 x (desarrollo de las microcolonias en las superficies de acero inoxidable) y a 7000 x (células filamentosas y SPE indicadas por flechas blancas nº1 y nº2, respectivamente). B) Observaciones por MEB de microcolonias de 14 días en cepa 14 desarrolladas en vino tinto en chips de acero inoxidable. Las magnificaciones fueron efectuadas a 7000 x (estructura tipo clamidospora indicada por una flecha blanca).
Tabla 1. Crecimiento de las microcolonias en chip de acero inoxidable en vino para las cepas 11 y 14 a 2 y 24 horas y 7 y 14 días. Los valores representan el promedio de tres replicados biológicos independientes, asignados con desviación estándar (valores grises). El signo * indica diferencias significativas (ANOVA, p-valor ≤ 0,05) entre las 2 cepas a un momento puntual.
Impacto del vino en el biofilm de B. bruxellensis
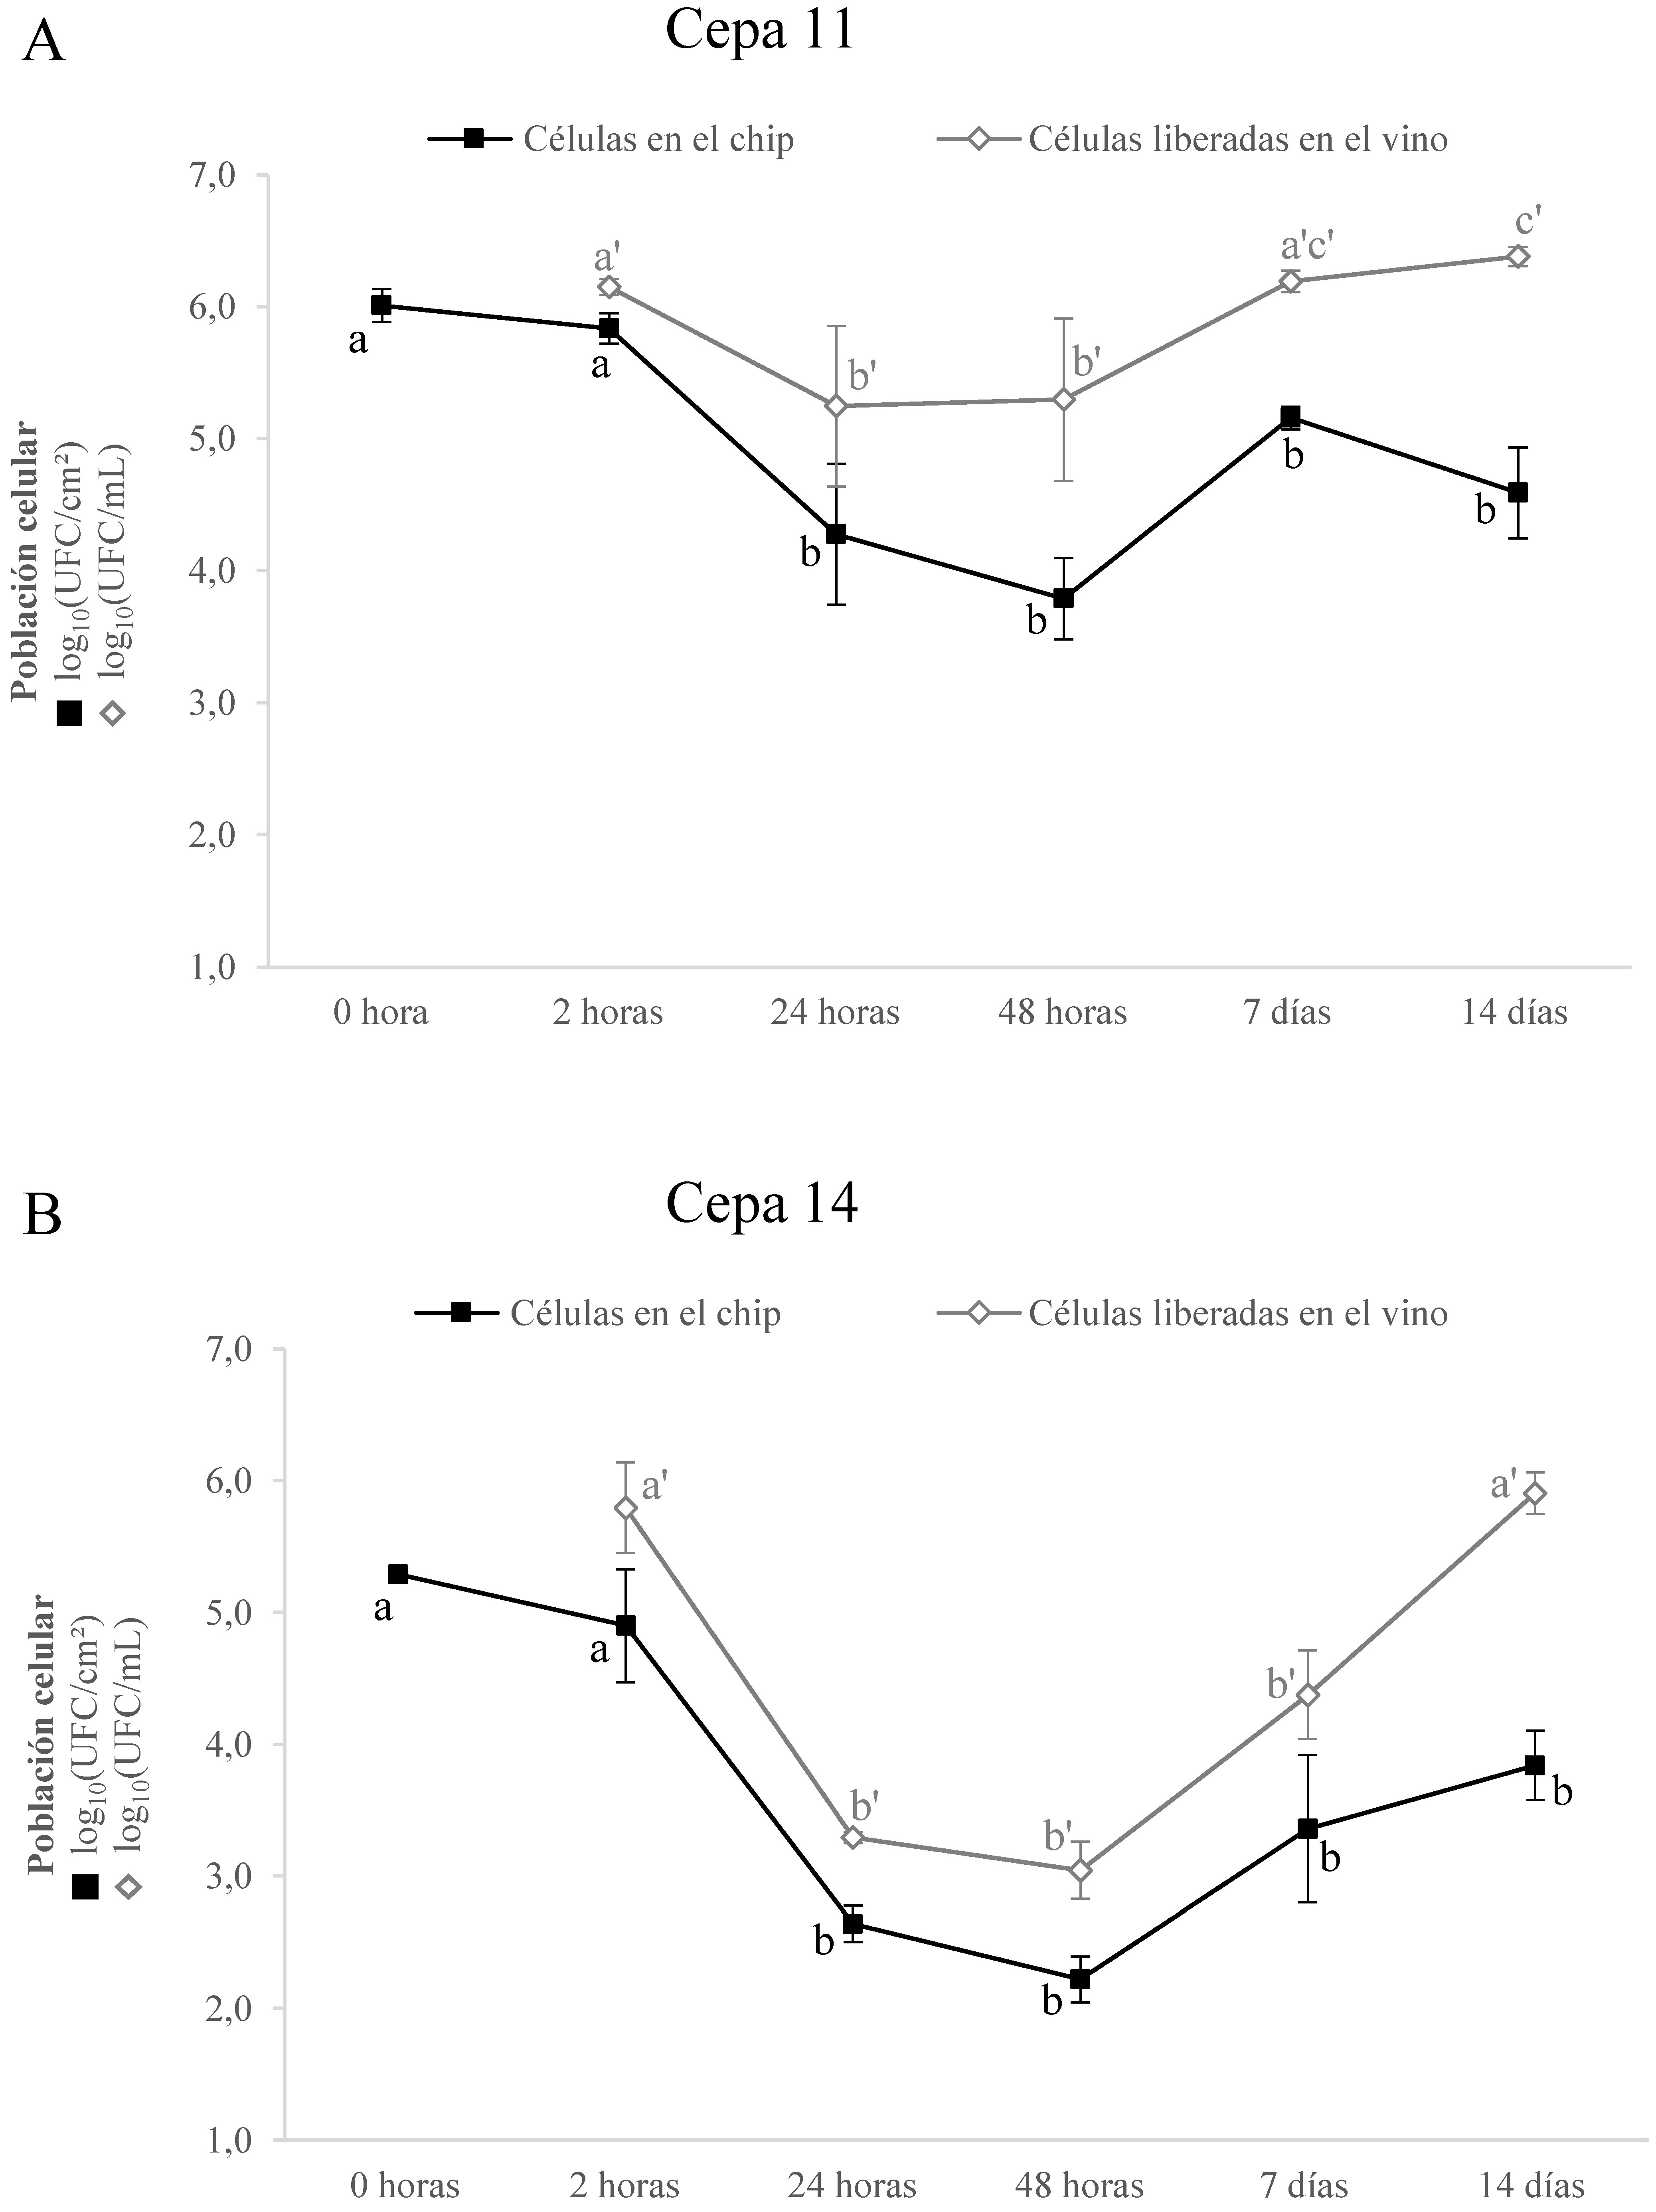
Primeramente, produjimos biofilms en chips de acero inoxidables en un medio YPD (como descrito previamente), y al cabo de 7 días de incubación, los chips con células adheridas en biofilms fueron transferidos al vino para estudiar el impacto del vino en biofilms de 7 días de B. bruxellensis. Dos tipos de células fueron enumeradas: (i) aquellas que se mantuvieron dentro del biofilm en los chips, y (ii) aquellas que fueron liberadas en el vino (Figura 2). Para ambas cepas, la cantidad de células dentro de los biofilms disminuyó significativamente después de 24 h, pero luego se mantuvo estable por hasta 14 días (Figuras 2A y 2B). Como descrito previamente, la cepa 14 fue más negativamente afectada por el vino que la cepa 11. Además, se observó un fenómeno importante de liberación de células desde el biofilm tan pronto como 2 h después de la inoculación en el vino (a alrededor de 106 UFC/mL) para ambas cepas (Figuras 2A y 2B). A partir de entonces, para la cepa 14, se observó una disminución en el número de células liberadas por 24 horas antes de mantenerse estable por hasta 7 días. Esto fue seguido de un incremento en el número de células entre el día 7 y el día 14. Se observó el mismo comportamiento para la cepa 11, aunque a menor alcance.
Figura 2. Comportamiento de las microcolonias en el vino para (A) la cepa 11 y (B) la cepa 14. La población celular en el chip se expresa en log10(UFC/cm²) y la población celular liberada en el vino en log10(UFC/mL). Las barras de error representan la desviación estándar entre tres réplicas independientes. Una letra diferente indica una diferencia significativa (ANOVA, p-valor ≤ 0,05).
Conclusión
En este estudio, la habilidad de la levadura contaminante B. bruxellensis para formar biofilms en acero inoxidable fue demostrada en el vino. Tal como ha sido descrito para otros microorganismos
NOTES
- Davey, M.E., & O'toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., & Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res Int, vol. 89, p. 620-630.
- Bastard, A., Coelho, C., Briandet, R., Canette, A., Gougeon, R., Alexandre, H., Guzzo, J., & Weidmann, S. (2016). Effect of biofilm formation by Oenococcus oeni on malolactic fermentation and the release of aromatic compounds in wine. Front Microbiol, vol. 7, p. 613.
- Martin, S.W., Douglas, L.M., & Konopka, J.B. (2005). Cell cycle dynamics and quorum sensing in Candida albicans chlamydospores are distinct from budding and hyphal growth. Eukaryot Cell, vol. 4, p. 1191-202.
- Davey, M.E., & O'toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Ojeda-Robertos NF, Torres-Acosta JF, Ayala-Burgos AJ, Sandoval-Castro CA, Valero-Coss RO, Mendoza-de-Gives P. 2009. Digestibility of Duddingtonia flagrans chlamydospores in ruminants: in vitro and in vivo studies. BMC Vet Res 5:46.
Citas
- Lebleux, M., Abdo, H., Coelho, C., Basmaciyan, L., Albertin, W., Maupeu, J., Laurent, J., Roullier-Gall., Alexandre, H. Guilloux-Benatier, M., Weidmann, & S. Rousseaux, S. (2020). “New Advances on the Brettanomyces bruxellensis Biofilm Mode of Life.” International Journal of Food Microbiology, vol. 318, p. 108464., doi:10.1016/j.ijfoodmicro.2019.108464.
- Davey, M.E., & O’toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Longin, C., Degueurce, C., Julliat, F., Guilloux-Benatier, M., Rousseaux, S., & Alexandre, H. (2016). Efficiency of population-dependent sulfite against Brettanomyces bruxellensis in red wine. Food Res Int, vol. 89, p. 620-630.
- Bastard, A., Coelho, C., Briandet, R., Canette, A., Gougeon, R., Alexandre, H., Guzzo, J., & Weidmann, S. (2016). Effect of biofilm formation by Oenococcus oeni on malolactic fermentation and the release of aromatic compounds in wine. Front Microbiol, vol. 7, p. 613.
- Martin, S.W., Douglas, L.M., & Konopka, J.B. (2005). Cell cycle dynamics and quorum sensing in Candida albicans chlamydospores are distinct from budding and hyphal growth. Eukaryot Cell, vol. 4, p. 1191-202.
- Davey, M.E., & O’toole, GA. (2000). Microbial Biofilms: from Ecology to Molecular Genetics. Microbiol Mol Biol Rev, vol. 64, p. 847-867.
- Ojeda-Robertos NF, Torres-Acosta JF, Ayala-Burgos AJ, Sandoval-Castro CA, Valero-Coss RO, Mendoza-de-Gives P. 2009. Digestibility of Duddingtonia flagrans chlamydospores in ruminants: in vitro and in vivo studies. BMC Vet Res 5:46.
Estadísticas de artículos
 Consultas: 3213
Descargas
 PDF: 222